

318 B IOLOGIE CELLULAIRE
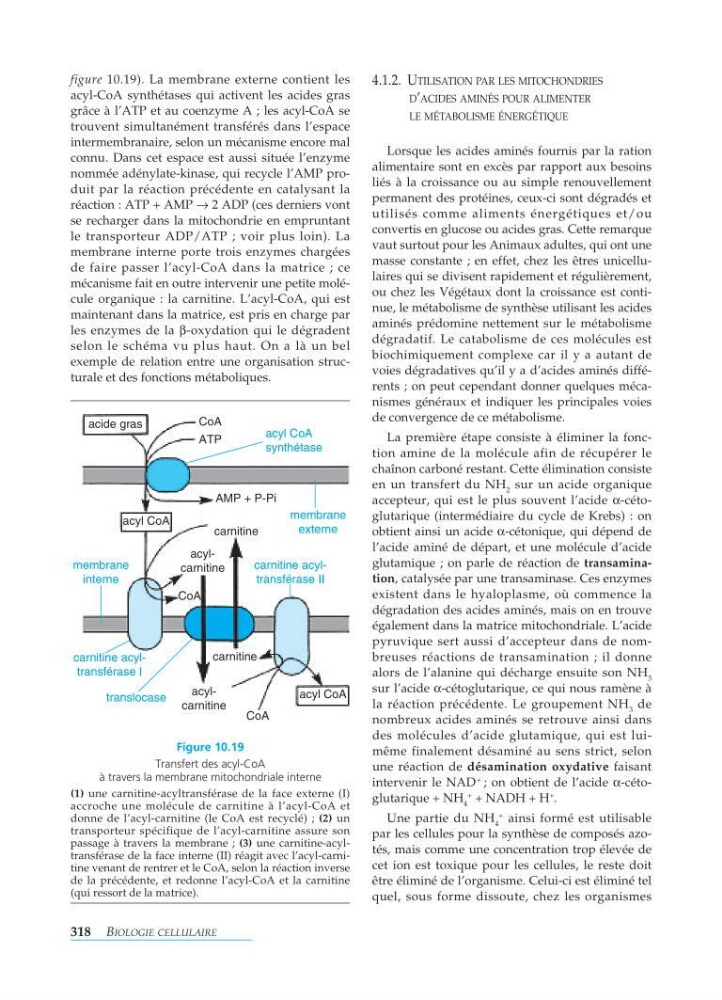
figure 10.19). La membrane externe contient les
acyl-CoA synthétases qui activent les acides gras
grâce à l’ATP et au coenzyme A;les acyl-CoA se
trouvent simultanément transférés dans l’espace
intermembranaire, selon un mécanisme encore mal
connu. Dans cet espace est aussi située l’enzyme
nommée adénylate-kinase, qui recycle l’AMP produit par la réaction précédente en catalysant la
réaction : ATP + AMP → 2 ADP (ces derniers vont
se recharger dans la mitochondriee n empruntant
le transporteur ADP/ATP ; voir plus loin). La
membrane interne porte trois enzymes chargées
de faire passer l’acyl-CoA dans la matrice ; ce
mécanisme fait en outre intervenir une petite molécule organique : la carnitine. L’acyl-CoA, qui est
maintenant dans la matrice, est pris en charge par
les enzymes de la β -oxydation qui le dégradent
selon le schéma vu plus haut. On a là un bel
exemple de relation entre une organisation structurale et des fonctions métaboliques.
4.1.2. U TILISATION PARL ES MITOCHONDRIES
D ’ ACIDES AMINÉS POUR ALIMENTER
LE MÉTABOLISME ÉNERGÉTIQUE
Lorsque les acides aminés fournis par la ration
alimentaire sont en excès par rapport aux besoins
liés à la croissance ou au simple renouvellement
permanent des protéines, ceux-ci sont dégradés et
utilisés comme aliments énergétiques et/ou
convertis en glucose ou acides gras. Cette remarque
vaut surtout pour les Animaux adultes, qui ont une
masse constante ; en effet, chez les êtres unicellulaires qui se divisent rapidement et régulièrement,
ou chez les Végétaux dont la croissance est continue, le métabolisme de synthèse utilisant les acides
aminés prédomine nettement sur le métabolisme
dégradatif. Le catabolisme de ces molécules est
biochimiquement complexe car il y a autant de
voies dégradatives qu’il y a d’acides aminés différents ; on peut cependant donner quelques mécanismes généraux et indiquer les principales voies
de convergence de ce métabolisme.
La première étape consiste à éliminer la fonction amine de la molécule afin de récupérer le
chaînon carboné restant. Cette élimination consiste
en un transfert du NH 2 sur un acide organique
accepteur, qui est le plus souvent l’acide α -cétoglutarique (intermédiaire du cycle de Krebs) : on
obtient ainsi un acide α -cétonique, qui dépend de
l’acide aminé de départ, et une molécule d’acide
glutamique ; on parle de réaction de transamination, catalysée par une transaminase. Ces enzymes
existent dans le hyaloplasme, où commence la
dégradation des acides aminés, mais on en trouve
également dans la matrice mitochondriale. L’acide
pyruvique sert aussi d’accepteur dans de nombreuses réactions de transamination ; il donne
alors de l’alanine qui décharge ensuite son NH 3
sur l’acide α -cétoglutarique, ce qui nous ramène à
la réaction précédente. Le groupement NH 3 de
nombreux acides aminés se retrouve ainsi dans
des molécules d’acide glutamique, qui est luimême finalement désaminé au sens strict, selon
une réaction de désamination oxydative faisant
intervenir le NAD
+
; on obtient de l’acide α -cétoglutarique + NH 4
+
+ NADH + H
+
.
Une partie du NH 4
+
ainsi formé est utilisable
par les cellules pour la synthèse de composés azotés, mais comme une concentration trop élevée de
cet ion est toxique pour les cellules, le reste doit
être éliminé de l’organisme. Celui-ci est éliminé tel
quel, sous forme dissoute, chez les organismes
Figure 10.19
Transfert des acyl-CoA
à travers la membrane mitochondriale interne
(1) une carnitine-acyltransférase de la face externe (I)
accroche une molécule de carnitine à l’acyl-CoA et
donne de l’acyl-carnitine (le CoA est recyclé) ; (2) un
transporteur spécifique de l’acyl-carnitine assure son
passage à travers la membrane ; (3) une carnitine-acyltransférase de la face interne (II) réagit avec l’acyl-carnitine venant de rentrer et le CoA, selon la réaction inverse
de la précédente, et redonne l’acyl-CoA et la carnitine
(qui ressort de la matrice).
acide gras
acyl CoA
acyl CoA
CoA
CoA
carnitine
carnitine
acylcarnitine
acylcarnitine
CoA
AMP +P-Pi
ATP
acyl CoA
synthétase
membrane
externe
membrane
interne
carnitine acyltransférase I
carnitine acyltransférase II
translocase