

chloroplastes sont capables de phosphoryler de
l’ADP en ATP, en présence de Pi, sous l’effet de la
lumière. Ce phénomène constitue une façon efficace de stocker l’énergie lumineuse, au même titre
que ce qui se produit dans les mitochondries
lorsqu’elles oxydent les substrats organiques : c’est
la phosphorylation photosynthétique ou photophosphorylation.
Une expérience capitale pour la compréhension
de ce phénomène, réalisée en 1966, montra l’importance du rôle d’un gradient transmembranaire de
protons dans la synthèse de l’ATP : des chloroplastes, à l’obscurité, peuvent fabriquer de l’ATP
lorsqu’une différence de pH artificielle est imposée de part et d’autre de la membrane thylakoïdienne. Cette expérience, simple dans son principe,
est la suivante : on laisse incuber à l’obscurité des
sacs thylakoïdiens purifiés dans un milieu tamponné à pH acide (pH 4), jusqu’à ce que le pH de
leur contenu s’équilibre avec celui du milieu ; on
les transfère ensuite rapidement dans un milieu à
pH légèrement basique (pH 8), en même temps
qu’on ajoute de l’ADP et du Pi. On constate alors
qu’une brusque et brève synthèse d’ATP accompagne le rééquilibrage des pH entre sacs thylakoïdiens et milieu : la disparition de l’important gradient de pH artificiel est directement responsable
de cette synthèse. Cette expérience constitua historiquement une preuve directe de la théorie chimiosmotique développée par P. M ITCHELL.
3.4.1. P HOTOPHOSPHORYLATION NON CYCLIQUE
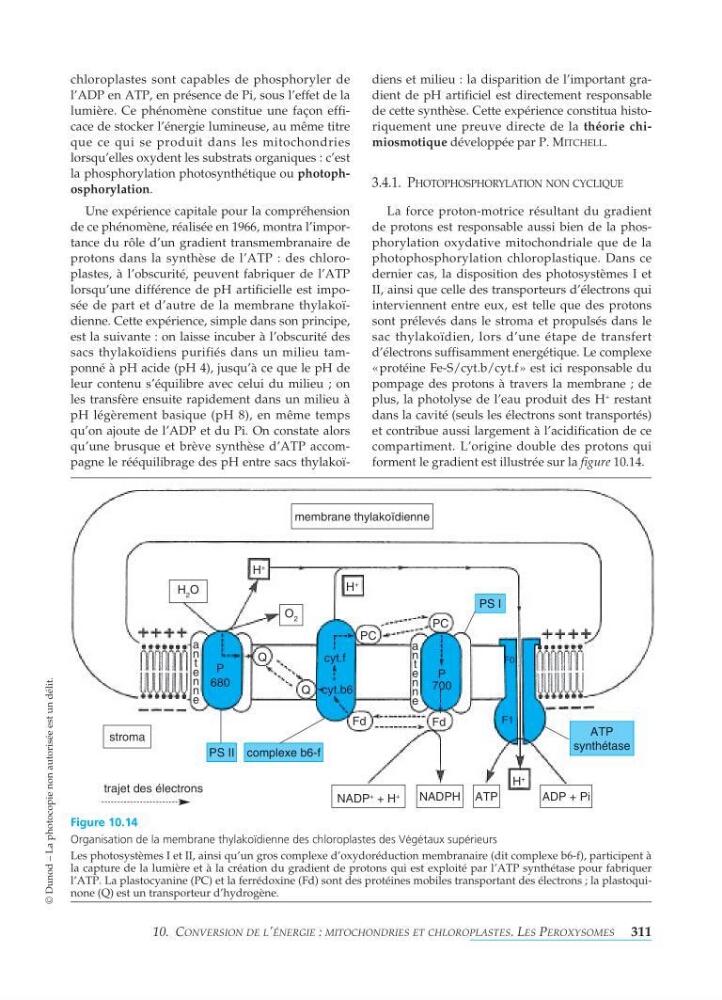
La force proton-motrice résultant du gradient
de protons est responsable aussi bien de la phosphorylation oxydative mitochondriale que de la
photophosphorylation chloroplastique. Dans ce
dernier cas, la disposition des photosystèmes I et
II, ainsi que celle des transporteurs d’électrons qui
interviennent entre eux, est telle que des protons
sont prélevés dans le stroma et propulsés dans le
sac thylakoïdien, lors d’une étape de transfert
d’électrons suffisamment energétique. Le complexe
«protéine Fe-S/cyt.b/cyt.f» est ici responsable du
pompage des protons à travers la membrane ; de
plus, la photolyse de l’eau produit des H
+
restant
dans la cavité (seuls les électrons sont transportés)
et contribue aussi largement à l’acidification de ce
compartiment. L’origine double des protons qui
forment le gradient est illustrée sur la figure 10.14.
10. C ONVERSION DE L ' ÉNERGIE : MITOCHONDRIES ET CHLOROPLASTES.L ES P EROXYSOMES 311
© Dunod – La photocopie non autorisée est un délit.
membrane thylakoïdienne
H 2 O
O 2
F0
F1
Q
Q
PC
PC
Fd
Fd
P
680
P
700
H
+
H
+
H
+
a
n
t
e
n
n
e
a
n
t
e
n
n
e
cyt.f
cyt.b6
PS I
PS II complexe b6-f
ATP
synthétase
NADP
+
+H
+
stroma
trajet des électrons
NADPH ATP
ADP +Pi
Figure 10.14
Organisation de la membrane thylakoïdienne des chloroplastes des Végétaux supérieurs
Les photosystèmes I et II, ainsi qu’un gros complexe d’oxydoréduction membranaire (dit complexe b6-f), participent à
la capture de la lumière et à la création du gradient de protons qui est exploité par l’ATP synthétase pour fabriquer
l’ATP. La plastocyanine (PC) et la ferrédoxine (Fd) sont des protéines mobiles transportant des électrons ; la plastoquinone (Q) est un transporteur d’hydrogène.