

308 B IOLOGIE CELLULAIRE
montre ainsi que toutes les longueurs d’onde n’ont
pas la même efficacité, mais on constate surtout
que la forme de la courbe obtenue se superpose
presque exactement au spectre d’absorption des
pigments totaux de l’organisme considéré. Chez
les Végétaux verts, deux pics principaux se dégagent dans les deux courbes, au niveau des couleurs bleues et rouges ; on note aussi un effet des
caroténoïdes (qui absorbent entre 450 et 500 nm)
qui se traduit par un épaulement net dans les
spectres d’action et d’absorption. Ce parallélisme
est également valable pour les spectres d’absorption et d’action obtenus chez les Algues brunes ou
rouges ; il permet de conclure sur le rôle des chlorophylles et des pigments accessoires en tant
qu’acteurs principaux de la capture de l’énergie
lumineuse dans les cellules.
Le processus de conversion de l’énergie commence lorsqu’un photon excite une molécule de
chlorophylle ; à cause de son énergie, ce photon
déplace un électron d’une orbite atomique vers une
autre, plus externe et de plus haute énergie. Cette
molécule excitée est une forme instable qui a naturellement tendance à retourner à son état initial
non excité de diverses manières ; on distingue
trois cas :
–émission de chaleur et/ou de fluorescence ;
–transfert de l’énergie de vibration de la molécule
excitée, par résonance, à une molécule voisine :
chlorophylle ou caroténoïde (ceci implique une
grande proximité des molécules). Dans ces deux
cas l’électron excité réintègre sa position initiale
sur sa molécule de départ ;
–transfert net de l’électron excité et énergétique à
une molécule voisine qui sert d’accepteur ; c’est
typiquement une réaction d’oxydoréduction, et
donc un mécanisme très différent des précédents.
Le problème crucial rencontré dans ce processus est celui de la durée des événements : le retour
de l’électron sur son orbitale initiale est très rapide
(de l’ordre de 4.10
–9
seconde !). Au sein des membranes des thylakoïdes (des chloroplastes ou des
Bactéries) les pigments sont en contact très étroit
les uns avec les autres et associés à des protéines
qui les stabilisent, de sorte que la durée des états
de transition électronique est sensiblement allongée. Dans ces conditions, les électrons excités sont
susceptibles d’être capturés par un accepteur stable
et l’oxydoréduction est réalisable. Dans les chloroplastes, les différents pigments photosynthétiques
sont associés à des protéines membranaires et forment des complexes multiprotéiques de grande
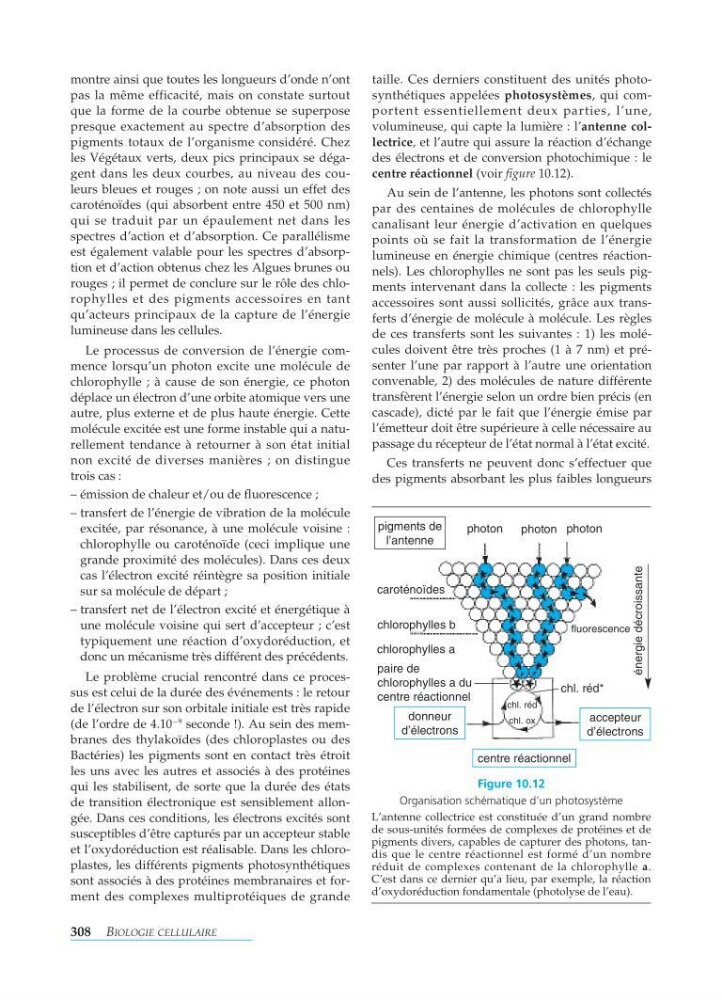
taille. Ces derniers constituent des unités photosynthétiques appelées photosystèmes, qui comportent essentiellement deux parties, l’une,
volumineuse, qui capte la lumière : l’antenne collectrice, et l’autre qui assure la réaction d’échange
des électrons et de conversion photochimique : le
centre réactionnel (voir figure 10.12).
Au sein de l’antenne, les photons sont collectés
par des centaines de molécules de chlorophylle
canalisant leur énergie d’activation en quelques
points où se fait la transformation de l’énergie
lumineuse en énergie chimique (centres réactionnels). Les chlorophylles ne sont pas les seuls pigments intervenant dans la collecte : les pigments
accessoires sont aussi sollicités, grâce aux transferts d’énergie de molécule à molécule. Les règles
de ces transferts sont les suivantes : 1) les molécules doivent être très proches (1 à 7n m) et présenter l’une par rapport à l’autre une orientation
convenable, 2) des molécules de nature différente
transfèrent l’énergie selon un ordre bien précis (en
cascade), dicté par le fait que l’énergie émise par
l’émetteur doit être supérieure à celle nécessaire au
passage du récepteur de l’état normal à l’état excité.
Ces transferts ne peuvent donc s’effectuer que
des pigments absorbant les plus faibles longueurs
Figure 10.12
Organisation schématique d’un photosystème
L’antenne collectrice est constituée d’un grand nombre
de sous-unités formées de complexes de protéines et de
pigments divers, capables de capturer des photons, tandis que le centre réactionnel est formé d’un nombre
réduit de complexes contenant de la chlorophylle a .
C’est dans ce dernier qu’a lieu, par exemple, la réaction
d’oxydoréduction fondamentale (photolyse de l’eau).
photon
caroténoïdes
chlorophylles b
chl. réd
chl. ox
chlorophylles a
paire de
chlorophylles a du
centre réactionnel
fluorescence
énergie décroissante
chl. réd*
photon photon
pigments de
l’antenne
donneur
d’électrons
accepteur
d’électrons
centre réactionnel