

10. C ONVERSION DE L ' ÉNERGIE : MITOCHONDRIES ET CHLOROPLASTES.L ES P EROXYSOMES 301
© Dunod – La photocopie non autorisée est un délit.
protéines à centres «fer-soufre » (Fe/S). L’étude
des potentiels d’oxydoréduction des couples
Red./Ox. constitués par ces molécules montre
qu’ils peuvent être classés, en fonction de leur E°’,
dans un ordre tel que le flux des électrons est théoriquement spontané depuis les coenzymes réduits
initiaux jusqu’à l’O 2 , pour former finalement H 2 O,
avec l’aide des protons (voir plus loin). Le constituant ayant le plus haut potentiel oxyde celui qui a
le plus bas potentiel ; c’est l’inverse si on parle de
réduction. Outre ces protéines, des petites molécules organiques simples, hydrophobes et incluses
dans la bicouche lipidique, servent de transporteurs mobiles d’hydrogène entre les complexes que
l’on vient de citer (par exemple : le coenzyme Q ).
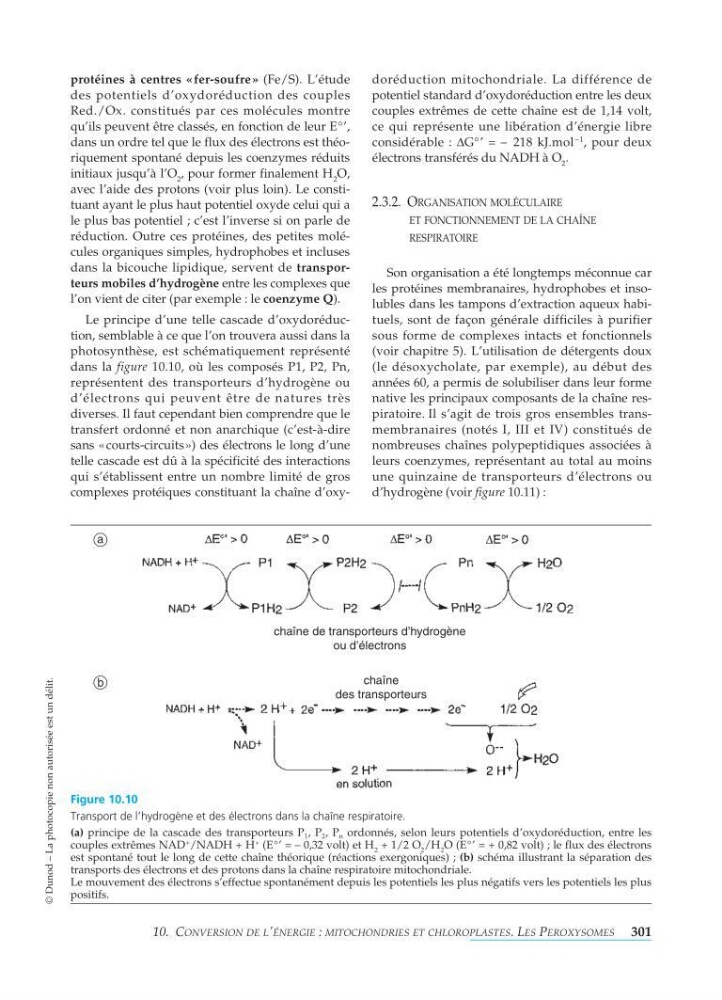
Le principe d’une telle cascade d’oxydoréduction, semblable à ce que l’on trouvera aussi dans la
photosynthèse, est schématiquement représenté
dans la figure 10.10, où les composés P1, P2, Pn,
représentent des transporteurs d’hydrogène ou
d’électrons qui peuvent être de natures très
diverses. Il faut cependant bien comprendre que le
transfert ordonné et non anarchique (c’est-à-dire
sans «courts-circuits ») des électrons le long d’une
telle cascade est dû à la spécificité des interactions
qui s’établissent entre un nombre limité de gros
complexes protéiques constituant la chaîne d’oxydoréduction mitochondriale. La différence de
potentiel standard d’oxydoréduction entre les deux
couples extrêmes de cette chaîne est de 1,14 volt,
ce qui représente une libération d’énergie libre
considérable : ∆ G°’ = –2 18 kJ.mol
–1
, pour deux
électrons transférés du NADH à O 2 .
2.3.2. O RGANISATION MOLÉCULAIRE
ET FONCTIONNEMENT DE LA CHAÎNE
RESPIRATOIRE
Son organisation a été longtemps méconnue car
les protéines membranaires, hydrophobes et insolubles dans les tampons d’extraction aqueux habituels, sont de façon générale difficiles à purifier
sous forme de complexes intacts et fonctionnels
(voir chapitre 5). L’utilisation de détergents doux
(le désoxycholate, par exemple), au début des
années 60, a permis de solubiliser dans leur forme
native les principaux composants de la chaîne respiratoire. Il s’agit de trois gros ensembles transmembranaires (notés I, III et IV) constitués de
nombreuses chaînes polypeptidiques associées à
leurs coenzymes, représentant au total au moins
une quinzaine de transporteurs d’électrons ou
d’hydrogène (voir figure 10.11) :
chaîne de transporteurs d’hydrogène
ou d’électrons
chaîne
des transporteurs
a
b
Figure 10.10
Transport de l’hydrogène et des électrons dans la chaîne respiratoire.
(a) principe de la cascade des transporteurs P 1 , P 2 , P n ordonnés, selon leurs potentiels d’oxydoréduction, entre les
couples extrêmes NAD
+
/NADH + H
+
(E°’ =–0,32 volt) et H 2 + 1/2 O 2 /H 2 O (E°’ = +0,82 volt) ; le flux des électrons
est spontané tout le long de cette chaîne théorique (réactions exergoniques);(b) schéma illustrant la séparation des
transports des électrons et des protons dans la chaîne respiratoire mitochondriale.
Le mouvement des électrons s’effectue spontanément depuis les potentiels les plus négatifs vers les potentiels les plus
positifs.