

10. C ONVERSION DE L ' ÉNERGIE : MITOCHONDRIES ET CHLOROPLASTES.L ES P EROXYSOMES 299
© Dunod – La photocopie non autorisée est un délit.
2.2. Le rôle majeur du cycle de Krebs :
la formation du pouvoir réducteur
2.2.1. D EVENIR DU PYRUVATEF ORMÉ
PARL AG LYCOLYSE :
LA FORMATION DE L ’ ACÉTYL-CO A
Le pyruvate franchit aisément la membrane
externe des mitochondries (par les pores déjà
signalés), puis il utilise pour franchir la membrane
interne une protéine porteuse spécifique (voir
plus loin). Une fois parvenu dans la matrice, il
subit une décarboxylation oxydative qui le transforme en résidu acétyl [CH 3 CO] grâce à l’intervention d’un coenzyme libre appelé coenzyme
A (CoA). Ce coenzyme est associé au fonctionnement d’un complexe enzymatique soluble de
grande taille : 40 nm de diamètre, 60 sous-unités et
45 00 kDa de masse moléculaire, appelé pyruvate
décarboxylase- déshydrogénase ; il est formé de
trois enzymes multimériques catalysant chacune
une réaction spécifique. Globalement, la réaction
est la suivante :
[CH 3 CO] COOH + Coenzyme A + NAD
+
[acétyl]
CoA
→ CO 2 + NADH + H
+
+ [CH 3 CO]-CoA
acétyl-CoA
Le bilan de celle-ci est donc : le dégagement d’un
CO 2 , la réduction d’un NAD
+
en NADH + H
+
, et la
formation d’un acétyl-CoA, dans lequel la partie
importante du point de vue métabolique, est le
seul chaînon dicarboné [CH 3 CO] issu du pyruvate. L’acétyl-CoA est une molécule centrale, une
«plaque tournante», dans le métabolisme énergétique car elle constitue un lieu de convergence de
la dégradation de nombreux nutriments, en particulier des acides gras qui constituent la réserve
énergétique par excellence.
2.2.2. L’ENTRÉE DE L ’ ACÉTYL-CO A
DANS LE CYCLE DE K REBS ET SON OXYDATION
Le chaînon dicarboné acétyl est condensé avec
l’acide oxaloacétique (diacide organique à quatre
carbones), en même temps que le CoA est régénéré. Le produit formé est l’acide citrique (l’acide
des citrons, bien connu comme additif alimentaire)
qui est un acide tricarboxylique à 6C;I’enzyme
de condensation est appelée citrate synthétase. Le
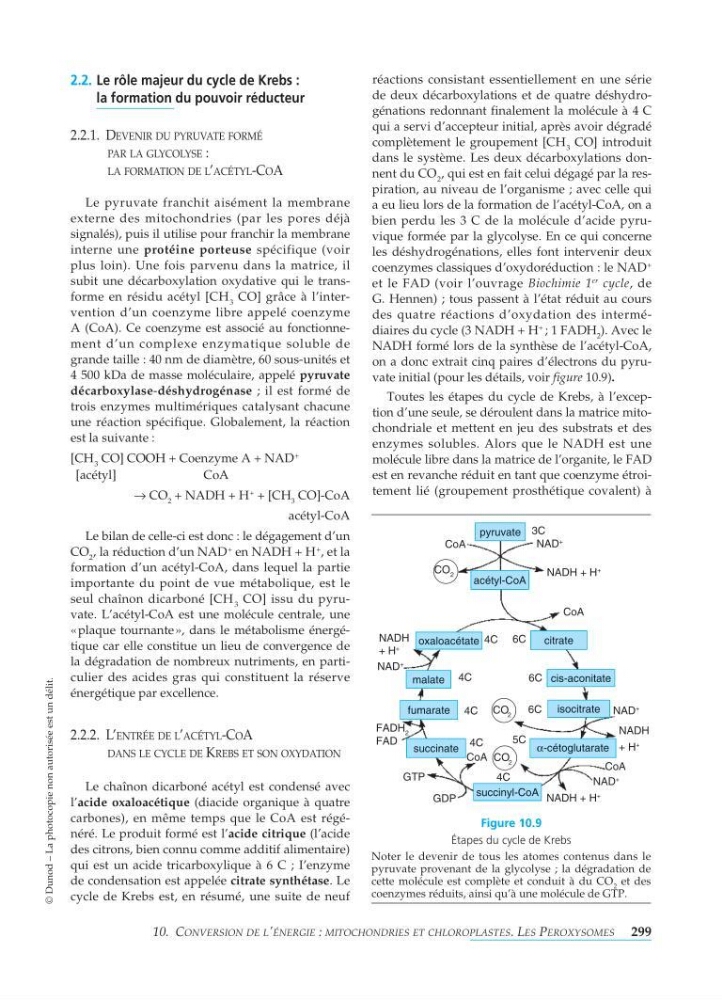
cycle de Krebs est, en résumé, une suite de neuf
réactions consistant essentiellement en une série
de deux décarboxylations et de quatre déshydrogénations redonnant finalement la molécule à 4C
qui a servi d’accepteur initial, après avoir dégradé
complètement le groupement [CH 3 CO] introduit
dans le système. Les deux décarboxylations donnent du CO 2 , qui est en fait celui dégagé par la respiration, au niveau de l’organisme ; avec celle qui
a eu lieu lors de la formation de l’acétyl-CoA, on a
bien perdu les 3 C de la molécule d’acide pyruvique formée par la glycolyse. En ce qui concerne
les déshydrogénations, elles font intervenir deux
coenzymes classiques d’oxydoréduction : le NAD
+
et le FAD (voir l’ouvrage Biochimie 1
er
cycle, de
G. Hennen) ; tous passent à l’état réduit au cours
des quatre réactions d’oxydation des intermédiaires du cycle (3 NADH + H
+
; 1FADH 2 ). Avec le
NADH formé lors de la synthèse de l’acétyl-CoA,
on a donc extrait cinq paires d’électrons du pyruvate initial (pour les détails, voir figure 10.9).
Toutes les étapes du cycle de Krebs, à l’exception d’une seule, se déroulent dans la matrice mitochondriale et mettent en jeu des substrats et des
enzymes solubles. Alors que le NADH est une
molécule libre dans la matrice de l’organite, le FAD
est en revanche réduit en tant que coenzyme étroitement lié (groupement prosthétique covalent) à
pyruvate
acétyl-CoA
citrate
cis-aconitate
isocitrate
α -cétoglutarate
succinyl-CoA
succinate
fumarate
malate
oxaloacétate
CoA
CoA
CoA
CoA
CO 2
5C
4C
6C
6C
6C
4C
4C
4C
4C
CO 2
CO 2
3C
NAD
+
NAD
+
NAD
+
NAD
+
FADH 2
FAD
GTP
GDP
NADH +H
+
NADH +H
+
NADH
+H
+
NADH
+H
+
Figure 10.9
Étapes du cycle de Krebs
Noter le devenir de tous les atomes contenus dans le
pyruvate provenant de la glycolyse ; la dégradation de
cette molécule est complète et conduit à du CO 2 et des
coenzymes réduits, ainsi qu’à une molécule de GTP.