

10. C ONVERSION DE L ' ÉNERGIE : MITOCHONDRIES ET CHLOROPLASTES.L ES P EROXYSOMES 297
© Dunod – La photocopie non autorisée est un délit.
gents spécifiques ou des chocs osmotiques, permettent de décortiquer complètement ces organites
en tous leurs compartiments, de la même façon
qu’une cellule peut être décomposée en ses organites. On peut donner quelques exemples d’apports
du fractionnement des mitochondries.
• Leur membrane externe est très riche en une
protéine nommée porine, qui forme des pores laissant passer des molécules dont la masse moléculaire va jusqu’à 6k Da ; cette membrane est donc
très perméable à tous les métabolites. De façon
étonnante, cette molécule remarquable est semblable à une protéine rencontrée dans la membrane externe des Bactéries Gram négatives (voir
chapitre 16).
• Leur membrane interne est dépourvue de
cholestérol, mais elle contient un phospholipide
unique, le diphosphatidyl-glycérol (cardiolipide),
molécule que seul cet organite est capable de synthétiser. Sa composition en protéines (70 à 80 %) et
en lipides (20 à 30 %) est très particulière, à la fois
quantitativement et qualitativement. Cette propriété, sans doute liée à sa richesse en un grand
nombre de transporteurs différents (voir plus loin),
est responsable de sa faible fluidité.
• Les mitoribosomes, l’ADN mitochondrial, des
ARN, de nombreuses enzymes spécifiques, etc.
sont aisément purifiables à partir d’extraits de la
matrice. La concentration protéique de celle-ci
atteindrait la valeur considérable de 500 mg/ml.
On démontre ainsi de façon reproductible que
certaines enzymes sont exclusivement localisées
dans un compartiment donné ; celles-ci servent
ensuite de moyen rapide de caractérisation de
fractions cellulaires isolées. Une notion importante
et générale se dégage donc de ces travaux, à savoir
celle de marqueur enzymatique.
1.3.2. C HLOROPLASTES
L’analyse chimique des différents compartiments des chloroplastes est également conduite
grâce aux techniques du fractionnement cellulaire.
Celles-ci sont relativement aisées en raison de la
grande taille de ces organites, de leur abondance
et de leur couleur, qui permettent des contrôles de
pureté rapides ; le matériel privilégié pour ce genre
d’approche a longtemps été la feuille d’épinard.
Comme dans le cas des mitochondries, on peut
faire éclater osmotiquement les chloroplastes et
purifier les différents compartiments qui les constituent grâce à des centrifugations appropriées en
gradient de saccharose. C’est ainsi qu’on montre,
par exemple, que les pigments photosynthétiques
des Végétaux supérieurs sont uniquement localisés dans les membranes des thylakoïdes. De la
même façon, on a mis en évidence, pour ces membranes, une exceptionnelle richesse en glycolipides,
responsable d’une grande fluidité ; l’isolement et
la caractérisation des photosystèmes (voir plus
loin) ont aussi été obtenus par ces techniques.
membrane externe
membrane externe
stroma
membrane interne
membrane
des thylacoïdes
espace
intrathylacoïde
lamelle granaire
lamelle
intergranaire
plastoglobule
plastoribosomes
membrane interne
espace
intermembranaire
espace
intermembranaire
mitoribosomes
crête
granum
amidon
ATP synthétase
ADN
chloroplastique
matrice ADN mitochondrial
globule lipidique
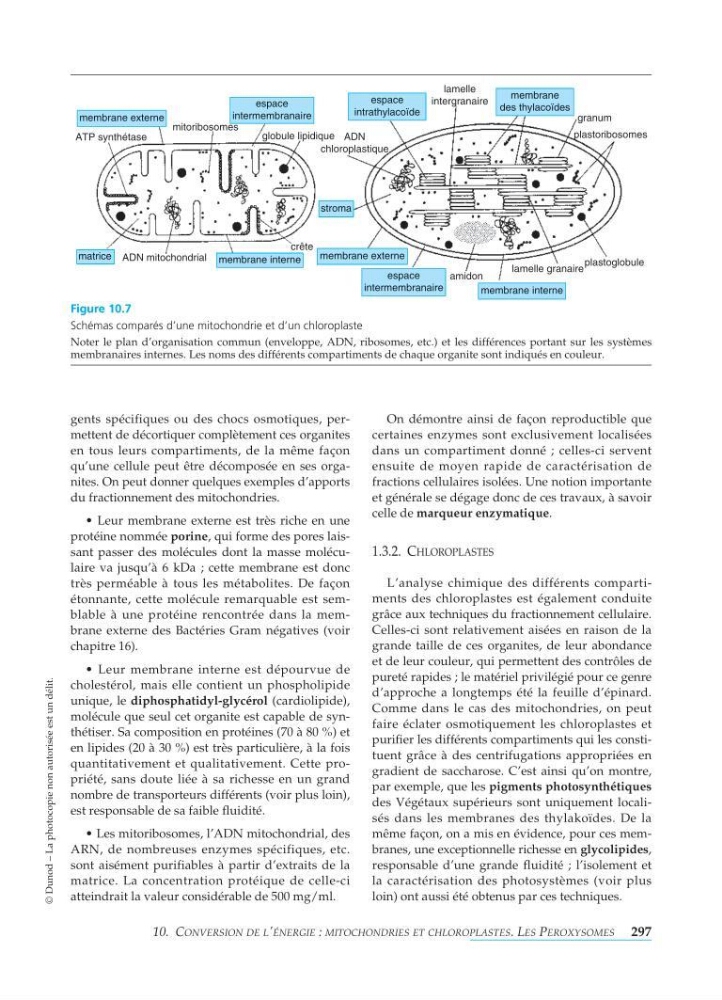
Figure 10.7
Schémas comparés d’une mitochondrie et d’un chloroplaste
Noter le plan d’organisation commun (enveloppe, ADN, ribosomes, etc.) et les différences portant sur les systèmes
membranaires internes. Les noms des différents compartiments de chaque organite sont indiqués en couleur.