

9. S YNTHÈ SE ET ROUTAGE DES PROTÉINES CHEZ LES EUCARYOTES. BIOGENÈ SE DES ORGANITES 277
© Dunod – La photocopie non autorisée est un délit.
sucres, dans les saccules cis des dictyosomes ; le
mécanisme de reconnaissance de ces dernières
sera décrit plus loin. Cette phosphorylation
empêche en fait toute évolution ultérieure de la
glycosylation car les diverses glycosidases golgiennes agissant ultérieurement sont inefficaces
sur des motifs glucidiques déjà phosphorylés. On
a là une première discrimination entre deux
familles de protéines au sein des saccules cis des
dictyosomes : on peut donc parler d’un étiquetage
moléculaire.
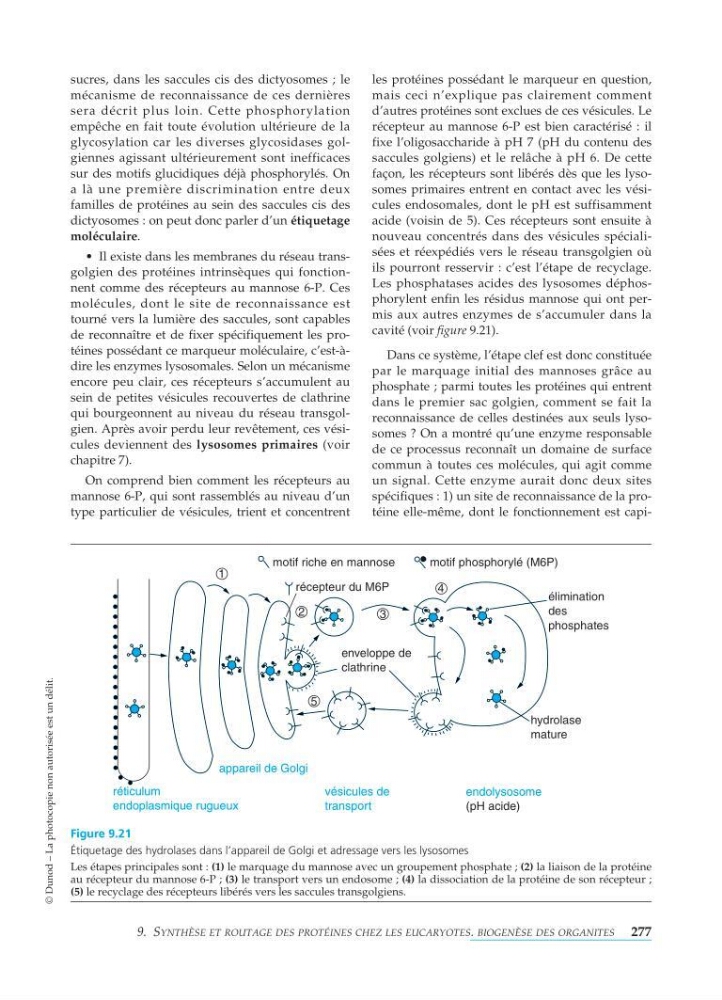
•I l existe dans les membranes du réseau transgolgien des protéines intrinsèques qui fonctionnent comme des récepteurs au mannose 6-P. Ces
molécules, dont le site de reconnaissance est
tourné vers la lumière des saccules, sont capables
de reconnaître et de fixer spécifiquement les protéines possédant ce marqueur moléculaire, c’est-àdire les enzymes lysosomales. Selon un mécanisme
encore peu clair, ces récepteurs s’accumulent au
sein de petites vésicules recouvertes de clathrine
qui bourgeonnent au niveau du réseau transgolgien. Après avoir perdu leur revêtement, ces vésicules deviennent des lysosomes primaires (voir
chapitre 7).
On comprend bien comment les récepteurs au
mannose 6-P, qui sont rassemblés au niveau d’un
type particulier de vésicules, trient et concentrent
les protéines possédant le marqueur en question,
mais ceci n’explique pas clairement comment
d’autres protéines sont exclues de ces vésicules. Le
récepteur au mannose 6-P est bien caractérisé : il
fixe l’oligosaccharide à pH 7 (pH du contenu des
saccules golgiens) et le relâche à pH 6. De cette
façon, les récepteurs sont libérés dès que les lysosomes primaires entrent en contact avec les vésicules endosomales, dont le pH est suffisamment
acide (voisin de 5). Ces récepteurs sont ensuite à
nouveau concentrés dans des vésicules spécialisées et réexpédiés vers le réseau transgolgien où
ils pourront resservir:c’est l’étape de recyclage.
Les phosphatases acides des lysosomes déphosphorylent enfin les résidus mannose qui ont permis aux autres enzymes de s’accumuler dans la
cavité (voir figure 9.21).
Dans ce système, l’étape clef est donc constituée
par le marquage initial des mannoses grâce au
phosphate ; parmi toutes les protéines qui entrent
dans le premier sac golgien, comment se fait la
reconnaissance de celles destinées aux seuls lysosomes?On a montré qu’une enzyme responsable
de ce processus reconnaît un domaine de surface
commun à toutes ces molécules, qui agit comme
un signal. Cette enzyme aurait donc deux sites
spécifiques : 1) un site de reconnaissance de la protéine elle-même, dont le fonctionnement est capimotif riche en mannose
motif phosphorylé (M6P)
élimination
des
phosphates
hydrolase
mature
endolysosome
(pH acide)
vésicules de
transport
appareil de Golgi
réticulum
endoplasmique rugueux
enveloppe de
clathrine
récepteur du M6P
1
2
3
4
5
Figure 9.21
Étiquetage des hydrolases dans l’appareil de Golgi et adressage vers les lysosomes
Les étapes principales sont : (1) le marquage du mannose avec un groupement phosphate ; (2) la liaison de la protéine
au récepteur du mannose 6-P ; (3) le transport vers un endosome ; (4) la dissociation de la protéine de son récepteur ;
(5) le recyclage des récepteurs libérés vers les saccules transgolgiens.