

264 B IOLOGIE CELLULAIRE
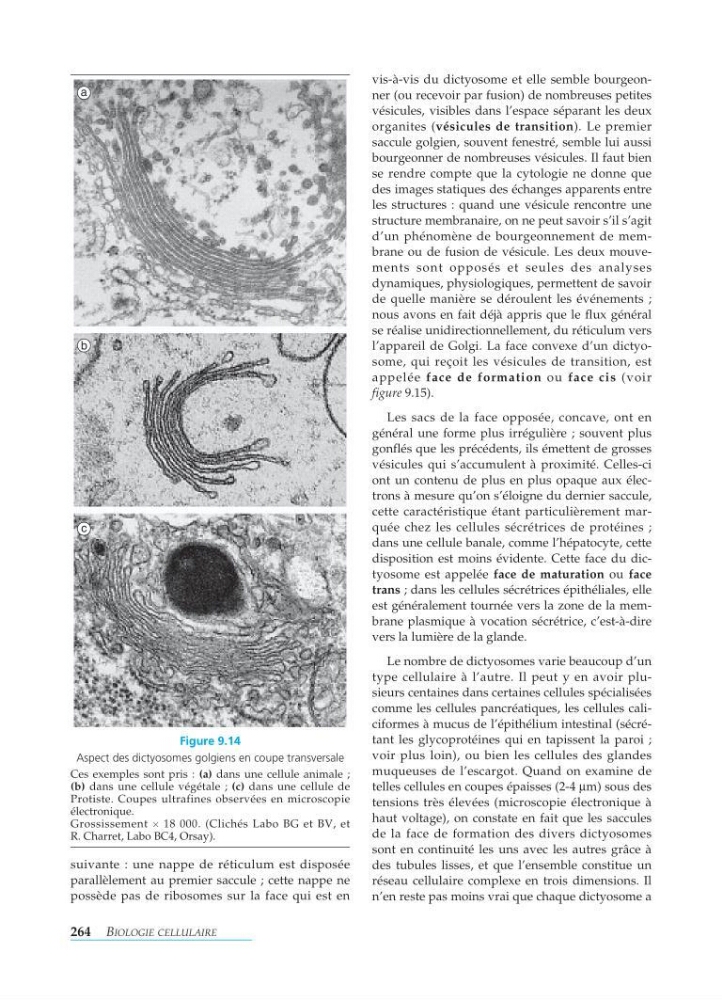
suivante : une nappe de réticulum est disposée
parallèlement au premier saccule ; cette nappe ne
possède pas de ribosomes sur la face qui est en
vis-à-vis du dictyosome et elle semble bourgeonner (ou recevoir par fusion) de nombreuses petites
vésicules, visibles dans l’espace séparant les deux
organites ( vésicules de transition). Le premier
saccule golgien, souvent fenestré, semble lui aussi
bourgeonner de nombreuses vésicules. Il faut bien
se rendre compte que la cytologie ne donne que
des images statiques des échanges apparents entre
les structures : quand une vésicule rencontre une
structure membranaire, on ne peut savoir s’il s’agit
d’un phénomène de bourgeonnement de membrane ou de fusion de vésicule. Les deux mouvements sont opposés et seules des analyses
dynamiques, physiologiques, permettent de savoir
de quelle manière se déroulent les événements ;
nous avons en fait déjà appris que le flux général
se réalise unidirectionnellement, du réticulum vers
l’appareil de Golgi. La face convexe d’un dictyosome, qui reçoit les vésicules de transition, est
appelée face de formation ou face cis (voir
figure 9.15).
Les sacs de la face opposée, concave, ont en
général une forme plus irrégulière ; souvent plus
gonflés que les précédents, ils émettent de grosses
vésicules qui s’accumulent à proximité. Celles-ci
ont un contenu de plus en plus opaque aux électrons à mesure qu’on s’éloigne du dernier saccule,
cette caractéristique étant particulièrement marquée chez les cellules sécrétrices de protéines ;
dans une cellule banale, comme l’hépatocyte, cette
disposition est moins évidente. Cette face du dictyosome est appelée face de maturation ou face
trans ; dans les cellules sécrétrices épithéliales, elle
est généralement tournée vers la zone de la membrane plasmique à vocation sécrétrice, c’est-à-dire
vers la lumière de la glande.
Le nombre de dictyosomes varie beaucoup d’un
type cellulaire à l’autre. Il peut y en avoir plusieurs centaines dans certaines cellules spécialisées
comme les cellules pancréatiques, les cellules caliciformes à mucus de l’épithélium intestinal (sécrétant les glycoprotéines qui en tapissent la paroi ;
voir plus loin), ou bien les cellules des glandes
muqueuses de l’escargot. Quand on examine de
telles cellules en coupes épaisses (2-4 µ m) sous des
tensions très élevées (microscopie électronique à
haut voltage), on constate en fait que les saccules
de la face de formation des divers dictyosomes
sont en continuité les uns avec les autres grâce à
des tubules lisses, et que l’ensemble constitue un
réseau cellulaire complexe en trois dimensions. Il
n’en reste pas moins vrai que chaque dictyosome a
Figure 9.14
Aspect des dictyosomes golgiens en coupe transversale
Ces exemples sont pris : (a) dans une cellule animale ;
(b) dans une cellule végétale ; (c) dans une cellule de
Protiste. Coupes ultrafines observées en microscopie
électronique.
Grossissement 18 000. (Clichés Labo BG et BV, et
R. Charret, Labo BC4, Orsay).
a
c
b