

9. S YNTHÈ SE ET ROUTAGE DES PROTÉINES CHEZ LES EUCARYOTES. BIOGENÈ SE DES ORGANITES 261
© Dunod – La photocopie non autorisée est un délit.
Grâce à certaines de ses enzymes, le RL est
aussi le lieu de l’élongation et de la désaturation
des acides gras ; par exemple, l’acide palmitique
(C16), fabriqué dans le hyaloplasme, est allongé en
acide stéarique (C18), puis désaturé en acide
oléique. Cette dernière réaction met en jeu un
intermédiaire hydroxylé (-HCOH-) formé grâce à
une courte chaîne de transport d’électrons membranaire : NADH (donneur d’électrons de haute
énergie), NADH oxydase à FAD et cytochrome b 5 ;
ces deux protéines intrinsèques ont leurs sites
actifs en regard du hyaloplasme. Une deuxième
chaîne de ce type, mettant en jeu le NADPH, une
NADPH oxydase à FAD et le cytochrome P 450 , permet, quant à elle, d’hydroxyler une grande variété
de substrats. Parmi ceux-ci, il faut citer le cholestérol et tous les stéroïdes hormonaux qui en dérivent, ainsi que les composés faisant l’objet d’une
détoxification (voir plus loin). Ces deux chaînes
d’oxydoréduction typiques du RL utilisent O 2
comme accepteur d’électrons, mais elles ne produisent pas d’ATP, à la différence de celles trouvées dans les mitochondries (voir chapitre 10).
Le RL est aussi le lieu de synthèse du cholestérol (à partir d’acétate) et du céramide ; bien que
fabriqués sur la face externe eux aussi, ces composés s’équilibrent spontanément sur les deux faces
(par basculement), en raison de la présence d’un
domaine polaire très réduit. Chez les Vertébrés, le
lieu essentiel de synthèse du cholestérol est le foie.
2.6.2. É CHANGES DE LIPIDES
AV EC LES AUTRES COMPARTIMENTS
Le RL, lieu quasi unique de synthèse des lipides
membranaires dans la cellule animale, les exporte
vers tous les autres compartiments de deux façons
très différentes. Étant en continuité physique avec
le RR, celui-ci reçoit ces lipides par le simple fait
de leur mobilité latérale et de la fluidité membranaire ; l’importance de ceci sera rappelée plus loin.
Le transport par vésicules assurera ensuite le passage de ces molécules à tous les compartiments
situés en aval du RR. C’est ainsi que le céramide
passe vers l’appareil de Golgi où il servira de substrat pour former la sphingomyéline (par acquisition d’une tête de choline, provenant de la
phosphatidyl-choline), ou bien les divers sphingoglycolipides (après glycosylation) ; ces composés
sont donc des produits tardifs du métabolisme des
lipides membranaires. Les enzymes membranaires
mises en jeu ayant leur site actif tourné vers la
lumière, ces lipides sont modifiés sur la seule face
interne des saccules golgiens. C’est également
cette voie qui fournit en permanence du cholestérol à la membrane plasmique, après exocytose des
vésicules de sécrétion (voie constitutive).
Divers phospholipides fabriqués au niveau du
RL partent aussi vers les mitochondries et les peroxysomes, où ils participent à la formation des
membranes, bien que ces organites soient en
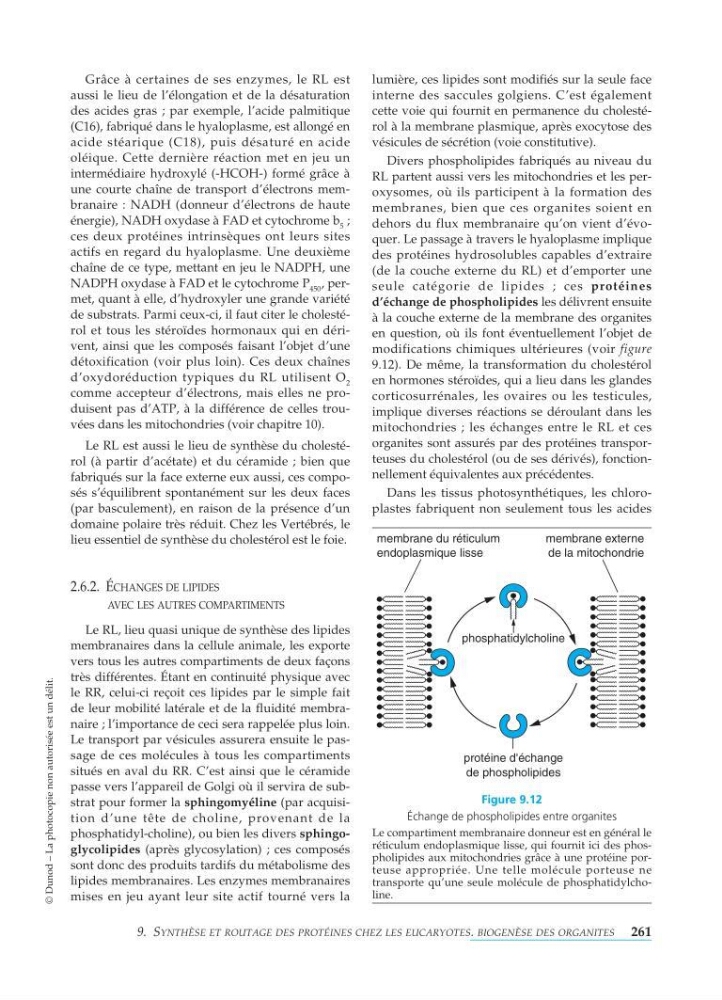
dehors du flux membranaire qu’on vient d’évoquer. Le passage à travers le hyaloplasme implique
des protéines hydrosolubles capables d’extraire
(de la couche externe du RL) et d’emporter une
seule catégorie de lipides ; ces protéines
d’échange de phospholipides les délivrent ensuite
à la couche externe de la membrane des organites
en question, où ils font éventuellement l’objet de
modifications chimiques ultérieures (voir figure
9.12). De même, la transformation du cholestérol
en hormones stéroïdes, qui a lieu dans les glandes
corticosurrénales, les ovaires ou les testicules,
implique diverses réactions se déroulant dans les
mitochondries ; les échanges entre le RL et ces
organites sont assurés par des protéines transporteuses du cholestérol (ou de ses dérivés), fonctionnellement équivalentes aux précédentes.
Dans les tissus photosynthétiques, les chloroplastes fabriquent non seulement tous les acides
phosphatidylcholine
protéine d'échange
de phospholipides
membrane du réticulum
endoplasmique lisse
membrane externe
de la mitochondrie
Figure 9.12
Échange de phospholipides entre organites
Le compartiment membranaire donneur est en général le
réticulum endoplasmique lisse, qui fournit ici des phospholipides aux mitochondries grâce à une protéine porteuse appropriée. Une telle molécule porteuse ne
transporte qu’une seule molécule de phosphatidylcholine.