

260 B IOLOGIE CELLULAIRE
préexistantes, soit incorporés en leur sein immédiatement après leur synthèse. De cette façon, les
membranes n’apparaissent jamais de novo au sein
des cellules, mais il y a simplement augmentation
de la surface de celles qui préexistent. Dans les cellules bactériennes, les enzymes de synthèse de ces
lipides sont localisées dans la membrane plasmique ; chez les Eucaryotes, cette activité est assurée soit par le RL, dans le cas des cellules animales,
soit par les chloroplastes, chez les Végétaux verts.
Ces membranes extensibles et qui «s’autofabriquent» sont qualifiées de biogéniques.
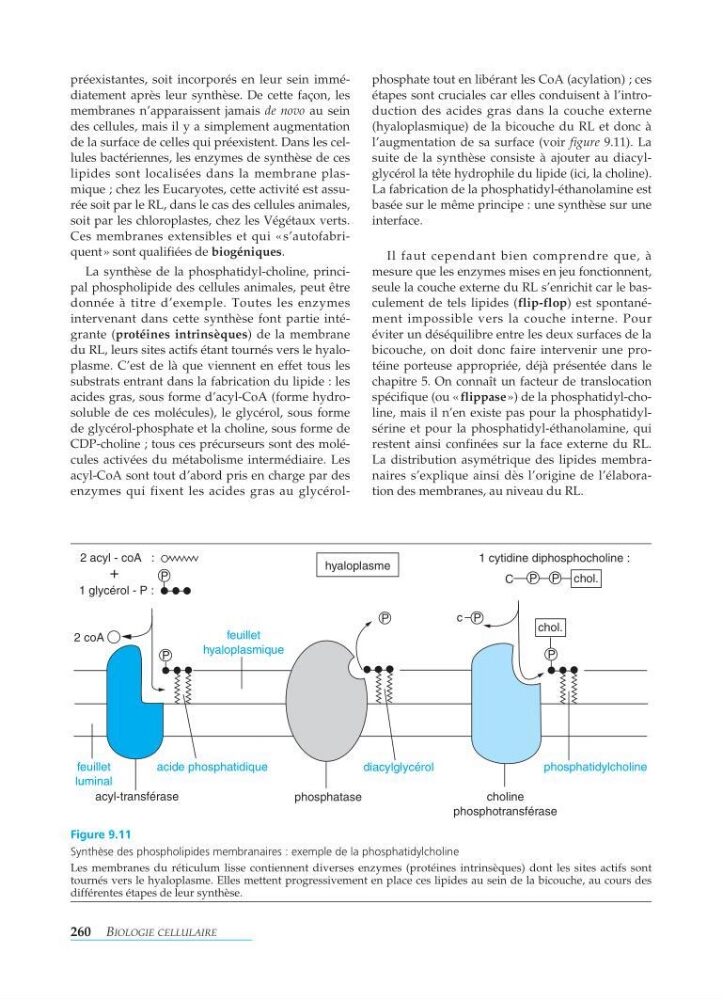
La synthèse de la phosphatidyl-choline, principal phospholipide des cellules animales, peut être
donnée à titre d’exemple. Toutes les enzymes
intervenant dans cette synthèse font partie intégrante ( protéines intrinsèques) de la membrane
du RL, leurs sites actifs étant tournés vers le hyaloplasme. C’est de là que viennent en effet tous les
substrats entrant dans la fabrication du lipide : les
acides gras, sous forme d’acyl-CoA (forme hydrosoluble de ces molécules), le glycérol, sous forme
de glycérol-phosphate et la choline, sous forme de
CDP-choline ; tous ces précurseurs sont des molécules activées du métabolisme intermédiaire. Les
acyl-CoA sont tout d’abord pris en charge par des
enzymes qui fixent les acides gras au glycérolphosphate tout en libérant les CoA (acylation) ; ces
étapes sont cruciales car elles conduisent à l’introduction des acides gras dans la couche externe
(hyaloplasmique) de la bicouche du RL et donc à
l’augmentation de sa surface (voir figure 9.11). La
suite de la synthèse consiste à ajouter au diacylglycérol la tête hydrophile du lipide (ici, la choline).
La fabrication de la phosphatidyl-éthanolamine est
basée sur le même principe : une synthèse sur une
interface.
Il faut cependant bien comprendre que, à
mesure que les enzymes mises en jeu fonctionnent,
seule la couche externe du RL s’enrichit car le basculement de tels lipides ( flip-flop) est spontanément impossible vers la couche interne. Pour
éviter un déséquilibre entre les deux surfaces de la
bicouche, on doit donc faire intervenir une protéine porteuse appropriée, déjà présentée dans le
chapitre 5. On connaît un facteur de translocation
spécifique (ou « flippase ») de la phosphatidyl-choline, mais il n’en existe pas pour la phosphatidylsérine et pour la phosphatidyl-éthanolamine, qui
restent ainsi confinées sur la face externe du RL.
La distribution asymétrique des lipides membranaires s’explique ainsi dès l’origine de l’élaboration des membranes, au niveau du RL.
P
2 coA
feuillet
luminal
acyl-transférase
acide phosphatidique
1 glycérol - P :
P
2 acyl - coA :
+
feuillet
hyaloplasmique
hyaloplasme
P
phosphatase
diacylglycérol
P
P
c
chol.
phosphatidylcholine
choline
phosphotransférase
1 cytidine diphosphocholine :
C P Pc hol.
Figure 9.11
Synthèse des phospholipides membranaires : exemple de la phosphatidylcholine
Les membranes du réticulum lisse contiennent diverses enzymes (protéines intrinsèques) dont les sites actifs sont
tournés vers le hyaloplasme. Elles mettent progressivement en place ces lipides au sein de la bicouche, au cours des
différentes étapes de leur synthèse.