

258 B IOLOGIE CELLULAIRE
rieur) est, comme on le verra, simplement due au
phénomène d’exocytose : il y a équivalence topologique entre les espaces constitués par la lumière
d’une vésicule et le milieu extracellulaire.
L’étude de la mise en place des protéines membranaires des Virus à enveloppe, qui bourgeonnent à partir de la membrane plasmique des
cellules animales, a permis de bien comprendre les
mécanismes mis en jeu dans ce système. En effet,
peu de temps après le début de l’infection virale,
toute la machinerie cellulaire est mise au service
du génome viral et elle ne fabrique plus que des
constituants codés par celui-ci (voir chapitre 15).
Comme les protéines du virion sont généralement
en nombre très réduit, ceci facilite considérablement l’analyse expérimentale, surtout lorsqu’on
procède à des marquages radioactifs à partir de ce
moment-là. Parmi les protéines virales, certaines
resteront dans le hyaloplasme, mais d’autres transiteront à travers le réticulum endoplasmique
rugueux, grâce aux mécanismes qu’on vient de
décrire. Dans tous les cas, situation normale ou
infection virale, ces protéines membranaires se
retrouveront dans les vésicules et les saccules golgiens puis seront incorporées finalement dans la
membrane cytoplasmique après exocytose.
2.5.2. P ASSAGE DES PROTÉINES DANS L ’ APPAREIL
DE G OLGI. L EURS DESTINATIONS FINALES
Les expériences autoradiographiques montrent
que toutes les protéines fabriquées dans le RR
gagnent, dans un deuxième temps (en 510 minutes), un autre organite unimembranaire
que nous analyserons plus tard : l’appareil de
Golgi. Le passage de l’un à l’autre s’effectue grâce
à des vésicules de 100 nm de diamètre environ, qui
bourgeonnent à partir des membranes du RR et
fusionnent avec des éléments proches de l’appareil
de Golgi. Ces vésicules emportent non seulement
une cargaison de protéines solubles contenue dans
leur lumière, mais aussi des protéines et des
lipides membranaires propres au RR ; compte tenu
de leur position entre les deux organites, elles portent le nom de vésicules de transition. La microscopie électronique montre que ces vésicules sont
recouvertes, du côté hyaloplasmique, d’un revêtement protéique épais d’une dizaine de nm. La
composition de ce manteau commence à être
connue, et elle diffère du revêtement géométrique
de clathrine dont il a été question lors de l’étude
de l’endocytose (voir chapitres 6 et 7), et dont on
reparlera plus loin.
hyaloplasme
ribosome
N
N
N
N
N
COOH
boucle A
séquence-signal
d'adressage de la
protéine membranaire
séquence d'initiation
de la boucle A
séquence de
terminaison
de la boucle A
boucle B
protéine membranaire
en place
NH 2
site de
clivage
lumière du réticulum
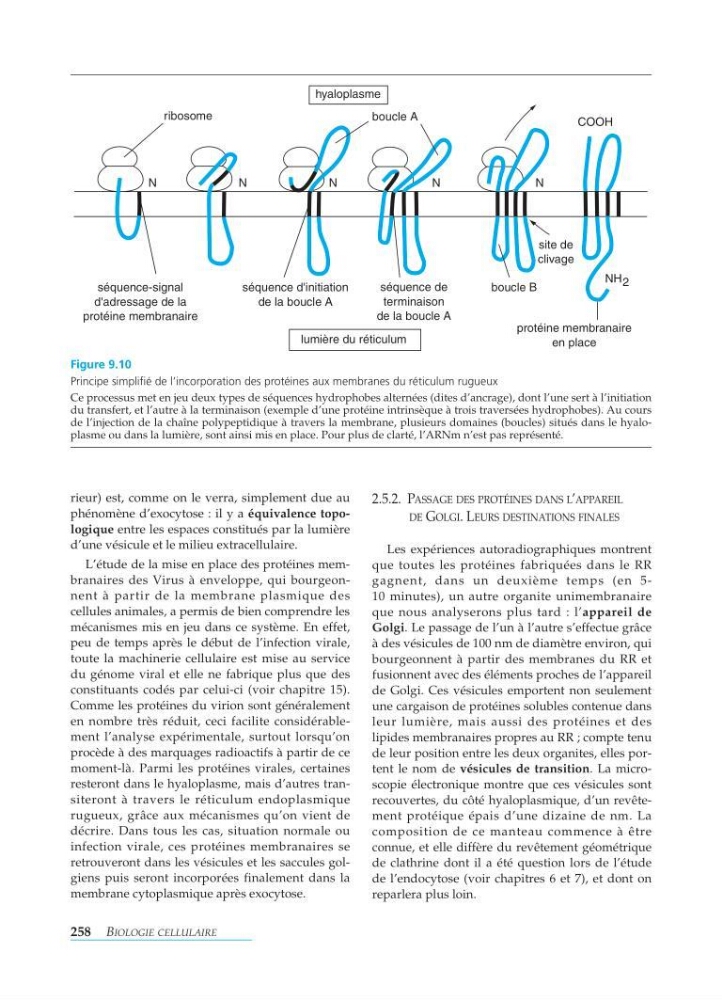
Figure 9.10
Principe simplifié de l’incorporation des protéines aux membranes du réticulum rugueux
Ce processus met en jeu deux types de séquences hydrophobes alternées (dites d’ancrage), dont l’une sert à l’initiation
du transfert, et l’autre à la terminaison (exemple d’une protéine intrinsèque à trois traversées hydrophobes). Au cours
de l’injection de la chaîne polypeptidique à travers la membrane, plusieurs domaines (boucles) situés dans le hyaloplasme ou dans la lumière, sont ainsi mis en place. Pour plus de clarté, l’ARNm n’est pas représenté.