

9. S YNTHÈ SE ET ROUTAGE DES PROTÉINES CHEZ LES EUCARYOTES. BIOGENÈ SE DES ORGANITES 257
© Dunod – La photocopie non autorisée est un délit.
gorie importante de protéines : les protéines membranaires, qui resteront ancrées dans la bicouche
du réticulum lui-même et feront partie intégrante,
dans un premier temps, de ce compartiment. Nous
avons vu dans le chapitre 5 que les protéines
intrinsèques transmembranaires sont parfois disposées de façon très complexe dans la bicouche :
si, dans certains cas, un seul segment hydrophobe
en hélice α suffit à ancrer la protéine, dans beaucoup d’autres, plusieurs segments font des aller et
retour à travers les phospholipides, déterminant
des boucles hydrophiles de chaque côté. On peut
en outre avoir les extrémités N et C de la chaîne
d’un même côté, ou bien de part et d’autre de la
membrane (et dans des dispositions opposées).
Ces protéines possèdent un système d’aiguillage
vers le réticulum identique à celles étudiées plus
haut ; le début de leur histoire est donc exactement
semblable. Comment se fait-il cependant que ces
molécules ne soient pas libérées dans la lumière
du RR, mais restent associées à la bicouche qui le
constitue et deviennent ainsi des protéines membranaires typiques ? Sans entrer dans les détails,
en raison de la diversité des situations rencontrées,
on peut dire que de longs segments hydrophobes
internes, le long de la chaîne polypeptidique, fonctionnent comme autant de séquences d’ancrage
membranaire (ou séquences topogéniques );lors
de la synthèse de la protéine par le ribosome,
celles-ci l’enchâssent progressivement dans la
bicouche, tout en disposant les domaines hydrophiles de part et d’autre. À la différence de la
séquence-signal hydrophobe vue plus haut, ces
séquences ne subissent évidemment pas de phénomène de clivage par une peptidase (voir figure 9.10).
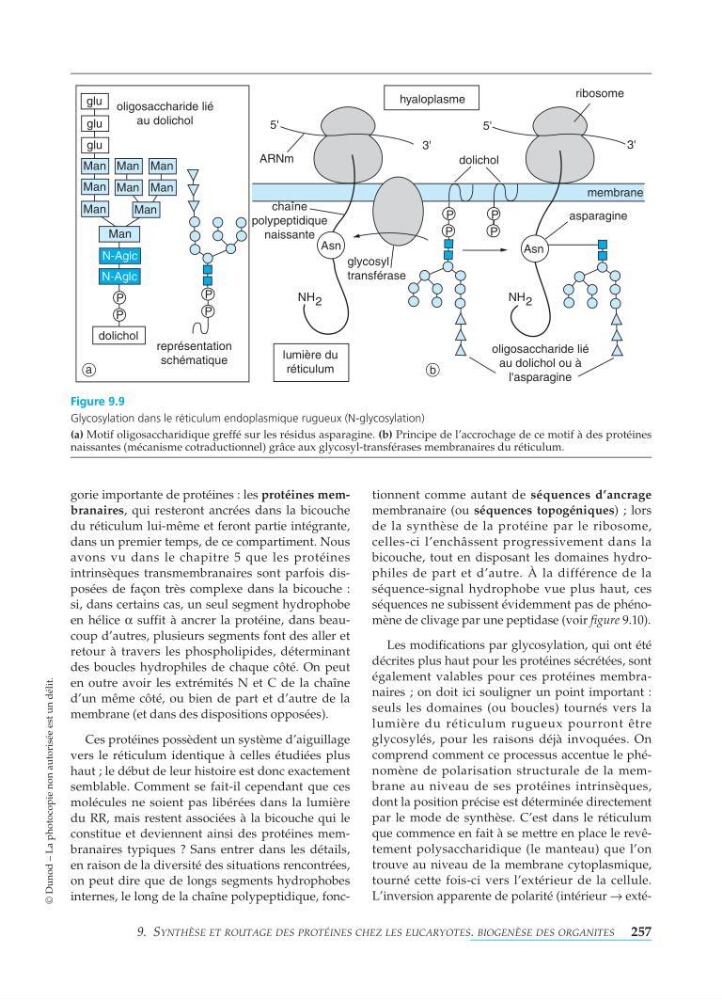
Les modifications par glycosylation, qui ont été
décrites plus haut pour les protéines sécrétées, sont
également valables pour ces protéines membranaires ; on doit ici souligner un point important :
seuls les domaines (ou boucles) tournés vers la
lumière du réticulum rugueux pourront être
glycosylés, pour les raisons déjà invoquées. On
comprend comment ce processus accentue le phénomène de polarisation structurale de la membrane au niveau de ses protéines intrinsèques,
dont la position précise est déterminée directement
par le mode de synthèse. C’est dans le réticulum
que commence en fait à se mettre en place le revêtement polysaccharidique (le manteau) que l’on
trouve au niveau de la membrane cytoplasmique,
tourné cette fois-ci vers l’extérieur de la cellule.
L’inversion apparente de polarité (intérieur → extéAsn
NH 2
3'
5'
3'
5'
ARNm
Asn
NH 2
glycosyl
transférase
ribosome
oligosaccharide lié
au dolichol ou à
l'asparagine
asparagine
dolichol
membrane
hyaloplasme
chaîne
polypeptidique
naissante
lumière du
réticulum
P
P
représentation
schématique
glu
glu
glu
Man
Man
Man
Man Man
Man Man
Man
Man
N-Aglc
N-Aglc
P
P
dolichol
oligosaccharide lié
au dolichol
P
P
P
P
Figure 9.9
Glycosylation dans le réticulum endoplasmique rugueux (N-glycosylation)
(a) Motif oligosaccharidique greffé sur les résidus asparagine. (b) Principe de l’accrochage de ce motif à des protéines
naissantes (mécanisme cotraductionnel) grâce aux glycosyl-transférases membranaires du réticulum.
a
b