

254 B IOLOGIE CELLULAIRE
gènes (et donc des ARNm) codant des protéines
chimères artificielles ( protéines de fusion) combinant une telle séquence hydrophobe à un polypeptide qui n’en possède normalement pas et qui ne
suit donc pas la voie des protéines sécrétées. Aussi
bien in vitro que in vivo, désormais, on peut vérifier
que cette protéine est dirigée vers les microsomes
ou le RR, et fabriquée selon le mode d’insertion
cotraductionnelle.
2.3.3. L AP ARTICULE DE RECONNAISSANCE DU SIGNAL
ET SON RÔLE
Contrairement à ce qui avait été cru initialement, ce n’est pas la séquence-signal N-terminale
elle-même qui reconnaît la membrane du RR, et
entraîne le ribosome en train de fabriquer la protéine qui la porte, vers ce compartiment. Il existe
en fait un intermédiaire hyaloplasmique faisant le
va-et-vient entre les ribosomes et un récepteur
membranaire spécifique situé dans le réticulum,
dont le site de reconnaissance est tourné vers
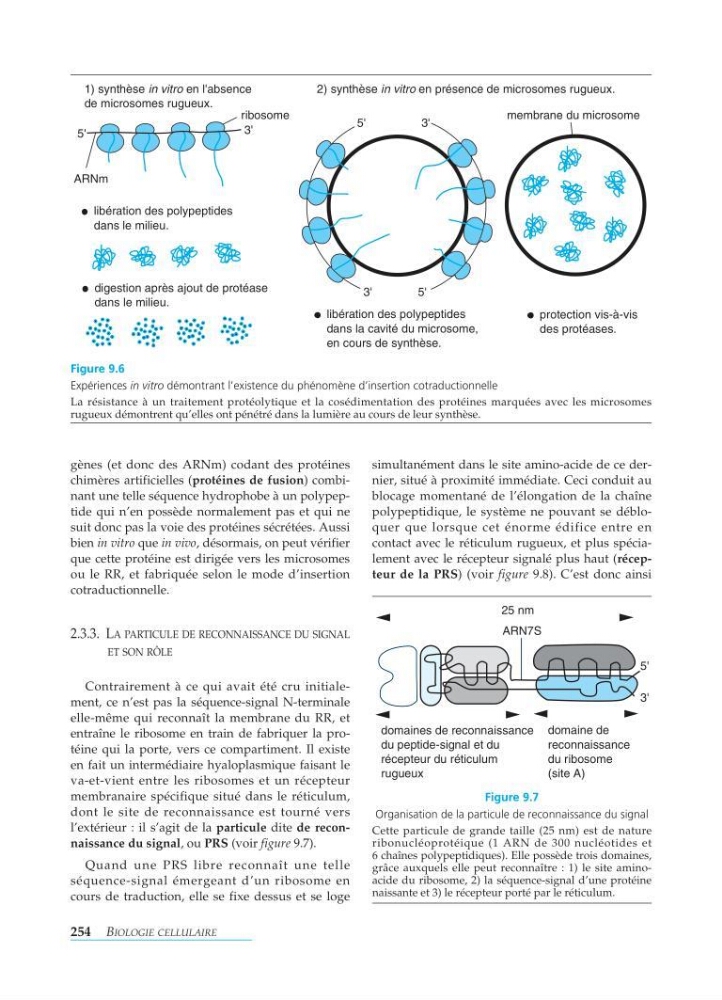
l’extérieur : il s’agit de la particule dite de reconnaissance du signal, ou PRS (voir figure 9.7).
Quand une PRS libre reconnaît une telle
séquence-signal émergeant d’un ribosome en
cours de traduction, elle se fixe dessus et se loge
simultanément dans le site amino-acide de ce dernier, situé à proximité immédiate. Ceci conduit au
blocage momentané de l’élongation de la chaîne
polypeptidique, le système ne pouvant se débloquer que lorsque cet énorme édifice entre en
contact avec le réticulum rugueux, et plus spécialement avec le récepteur signalé plus haut ( récepteur de la PRS)( voir figure 9.8). C’est donc ainsi
5'
3'
3'
5'
5'
3'
ARNm
ribosome
1) synthèse in vitro en l'absence
de microsomes rugueux.
2) synthèse in vitro en présence de microsomes rugueux.
membrane du microsome
libération des polypeptides
dans le milieu.
digestion après ajout de protéase
dans le milieu.
libération des polypeptides
dans la cavité du microsome,
en cours de synthèse.
protection vis-à-vis
des protéases.
Figure 9.6
Expériences in vitro démontrant l’existence du phénomène d’insertion cotraductionnelle
La résistance à un traitement protéolytique et la cosédimentation des protéines marquées avec les microsomes
rugueux démontrent qu’elles ont pénétré dans la lumière au cours de leur synthèse.
5'
3'
ARN7S
domaines de reconnaissance
du peptide-signal et du
récepteur du réticulum
rugueux
domaine de
reconnaissance
du ribosome
(site A)
25 nm
Figure 9.7
Organisation de la particule de reconnaissance du signal
Cette particule de grande taille (25 nm) est de nature
ribonucléoprotéique (1 ARN de 300 nucléotides et
6chaînes polypeptidiques). Elle possède trois domaines,
grâce auxquels elle peut reconnaître : 1) le site aminoacide du ribosome, 2) la séquence-signal d’une protéine
naissante et 3) le récepteur porté par le réticulum.