

possible, de cette façon, de fabriquer des protéines
différentes à partir d’un seul gène au départ : c’est
ce qu’on appelle l’épissage alternatif (voir plus
loin). Ce processus intervient dans les phénomènes de différenciation cellulaire : un seul gène
est utilisé à des fins différentes suivant le tissu
considéré, où il a une expression spécifique. Les
mécanismes précis contrôlant l’épissage alternatif
restent encore mal compris.
La question de la quantité d’ADN informatif
dans les génomes d’Eucaryotes a été évoquée dans
le chapitre 4. Connaissant la structure des gènes
chez ces organismes, et sachant qu’il existe de très
longues séquences d’ADN non transcrites, les
séparant, on comprend mieux pourquoi seule une
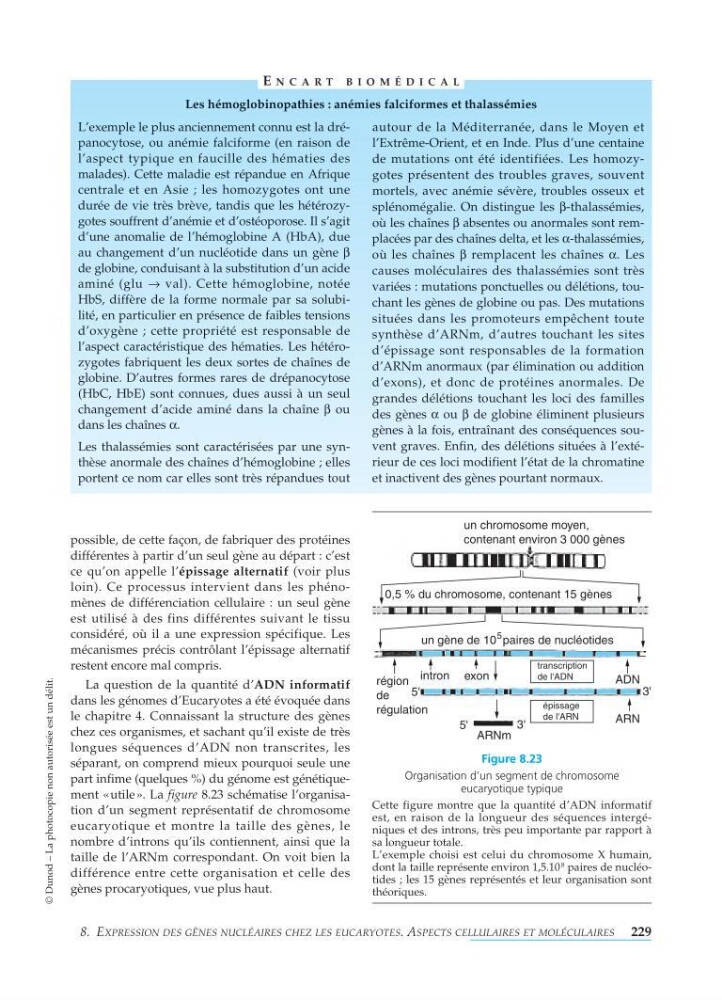
part infime (quelques %) du génome est génétiquement «utile». La figure 8.23 schématise l’organisation d’un segment représentatif de chromosome
eucaryotique et montre la taille des gènes, le
nombre d’introns qu’ils contiennent, ainsi que la
taille de l’ARNm correspondant. On voit bien la
différence entre cette organisation et celle des
gènes procaryotiques, vue plus haut.
8. E XPRESSION DES G È NES NUCLÉAIRES CHEZ LES EUCARYOTES.A SPECTS CELLULAIRES ET MOLÉCULAIRES 229
© Dunod – La photocopie non autorisée est un délit.
Les hémoglobinopathies : anémies falciformes et thalassémies
E NCARTB IOMÉDICAL
L’exemple le plus anciennement connu est la drépanocytose, ou anémie falciforme (en raison de
l’aspect typique en faucille des hématies des
malades). Cette maladie est répandue en Afrique
centrale et en Asie ; les homozygotes ont une
durée de vie très brève, tandis que les hétérozygotes souffrent d’anémie et d’ostéoporose. Il s’agit
d’une anomalie de l’hémoglobine A (HbA), due
au changement d’un nucléotide dans un gène β
de globine, conduisant à la substitution d’un acide
aminé (glu → val). Cette hémoglobine, notée
HbS, diffère de la forme normale par sa solubilité, en particulier en présence de faibles tensions
d’oxygène ; cette propriété est responsable de
l’aspect caractéristique des hématies. Les hétérozygotes fabriquent les deux sortes de chaînes de
globine. D’autres formes rares de drépanocytose
(HbC, HbE) sont connues, dues aussi à un seul
changement d’acide aminé dans la chaîne β ou
dans les chaînes α .
Les thalassémies sont caractérisées par une synthèse anormale des chaînes d’hémoglobine ; elles
portent ce nom car elles sont très répandues tout
autour de la Méditerranée, dans le Moyen et
l’Extrême-Orient, et en Inde. Plus d’une centaine
de mutations ont été identifiées. Les homozygotes présentent des troubles graves, souvent
mortels, avec anémie sévère, troubles osseux et
splénomégalie. On distingue les β -thalassémies,
où les chaînes β absentes ou anormales sont remplacées par des chaînes delta, et les α -thalassémies,
où les chaînes β remplacent les chaînes α . Les
causes moléculaires des thalassémies sont très
variées : mutations ponctuelles ou délétions, touchant les gènes de globine ou pas. Des mutations
situées dans les promoteurs empêchent toute
synthèse d’ARNm, d’autres touchant les sites
d’épissage sont responsables de la formation
d’ARNm anormaux (par élimination ou addition
d’exons), et donc de protéines anormales. De
grandes délétions touchant les loci des familles
des gènes α ou β de globine éliminent plusieurs
gènes à la fois, entraînant des conséquences souvent graves. Enfin, des délétions situées à l’extérieur de ces loci modifient l’état de la chromatine
et inactivent des gènes pourtant normaux.
un chromosome moyen,
contenant environ 3 000 gènes
0,5 % du chromosome, contenant 15 gènes
ADN
ARN
exon
intron
région
de
régulation
un gène de 10 paires de nucléotides
5
transcription
de l'ADN
épissage
de l'ARN
ARNm
5'
3'
5'
3'
Figure 8.23
Organisation d’un segment de chromosome
eucaryotique typique
Cette figure montre que la quantité d’ADN informatif
est, en raison de la longueur des séquences intergéniques et des introns, très peu importante par rapport à
sa longueur totale.
L’exemple choisi est celui du chromosome X humain,
dont la taille représente environ 1,5.10
8
paires de nucléotides ; les 15 gènes représentés et leur organisation sont
théoriques.