

228 B IOLOGIE CELLULAIRE
à ces complexes, qui comportent eux-mêmes des
séquences consensus complémentaires ! C’est pour
cette raison qu’un nombre limité de ces particules
est capable d’assurer la maturation d’une infinité –
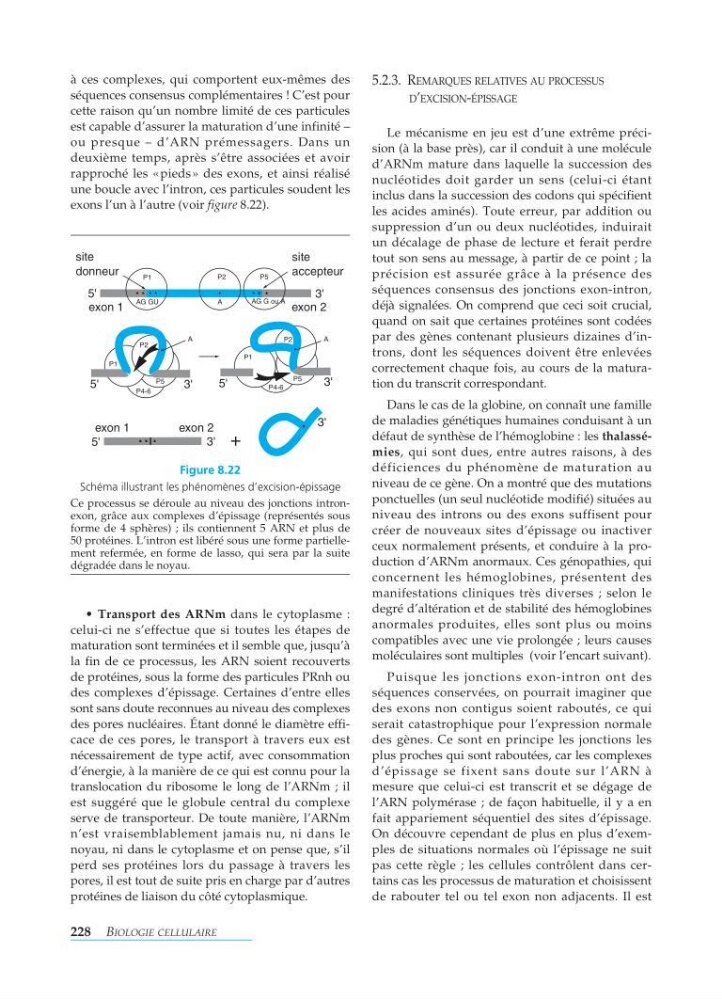
ou presque – d’ARN prémessagers. Dans un
deuxième temps, après s’être associées et avoir
rapproché les «pieds» des exons, et ainsi réalisé
une boucle avec l’intron, ces particules soudent les
exons l’un à l’autre (voir figure 8.22).
• Transport des ARNm dans le cytoplasme :
celui-ci ne s’effectue que si toutes les étapes de
maturation sont terminées et il semble que, jusqu’à
la fin de ce processus, les ARN soient recouverts
de protéines, sous la forme des particules PRnh ou
des complexes d’épissage. Certaines d’entre elles
sont sans doute reconnues au niveau des complexes
des pores nucléaires. Étant donné le diamètre efficace de ces pores, le transport à travers eux est
nécessairement de type actif, avec consommation
d’énergie, à la manière de ce qui est connu pour la
translocation du ribosome le long de l’ARNm ; il
est suggéré que le globule central du complexe
serve de transporteur. De toute manière, l’ARNm
n’est vraisemblablement jamais nu, ni dans le
noyau, ni dans le cytoplasme et on pense que, s’il
perd ses protéines lors du passage à travers les
pores, il est tout de suite pris en charge par d’autres
protéines de liaison du côté cytoplasmique.
5.2.3. R EMARQUES RELATIVES AU PROCESSUS
D ’ EXCISION- ÉPISSAGE
Le mécanisme en jeu est d’une extrême précision (à la base près), car il conduit à une molécule
d’ARNm mature dans laquelle la succession des
nucléotides doit garder un sens (celui-ci étant
inclus dans la succession des codons qui spécifient
les acides aminés). Toute erreur, par addition ou
suppression d’un ou deux nucléotides, induirait
un décalage de phase de lecture et ferait perdre
tout son sens au message, à partir de ce point ; la
précision est assurée grâce à la présence des
séquences consensus des jonctions exon-intron,
déjà signalées. On comprend que ceci soit crucial,
quand on sait que certaines protéines sont codées
par des gènes contenant plusieurs dizaines d’introns, dont les séquences doivent être enlevées
correctement chaque fois, au cours de la maturation du transcrit correspondant.
Dans le cas de la globine, on connaît une famille
de maladies génétiques humaines conduisant à un
défaut de synthèse de l’hémoglobine : les thalassémies, qui sont dues, entre autres raisons, à des
déficiences du phénomène de maturation au
niveau de ce gène. On a montré que des mutations
ponctuelles (un seul nucléotide modifié) situées au
niveau des introns ou des exons suffisent pour
créer de nouveaux sites d’épissage ou inactiver
ceux normalement présents, et conduire à la production d’ARNm anormaux. Ces génopathies, qui
concernent les hémoglobines, présentent des
manifestations cliniques très diverses ; selon le
degré d’altération et de stabilité des hémoglobines
anormales produites, elles sont plus ou moins
compatibles avec une vie prolongée ; leurs causes
moléculaires sont multiples (voir l’encart suivant).
Puisque les jonctions exon-intron ont des
séquences conservées, on pourrait imaginer que
des exons non contigus soient raboutés, ce qui
serait catastrophique pour l’expression normale
des gènes. Ce sont en principe les jonctions les
plus proches qui sont raboutées, car les complexes
d’épissage se fixent sans doute sur l’ARN à
mesure que celui-ci est transcrit et se dégage de
l’ARN polymérase ; de façon habituelle, il y a en
fait appariement séquentiel des sites d’épissage.
On découvre cependant de plus en plus d’exemples de situations normales où l’épissage ne suit
pas cette règle ; les cellules contrôlent dans certains cas les processus de maturation et choisissent
de rabouter tel ou tel exon non adjacents. Il est
5'
P1
AG GU
A
AG G ou A exon 2
exon 1
site
donneur
site
accepteur
P2
P5
3'
A
P1
P2
P4-6
P5
3'
5'
A
P4-6
P1
P5
P2
5'
3'
exon 1
exon 2 +
3'
3'
5'
Figure 8.22
Schéma illustrant les phénomènes d’excision-épissage
Ce processus se déroule au niveau des jonctions intronexon, grâce aux complexes d’épissage (représentés sous
forme de 4 sphères) ; ils contiennent 5 ARN et plus de
50 protéines. L’intron est libéré sous une forme partiellement refermée, en forme de lasso, qui sera par la suite
dégradée dans le noyau.