

mérase. Presque tous les ARNm des Eucaryotes
possèdent une queue en 3’ OH, constituée de 150
à 200 nucléotides d’adénine (AMP), et ajoutée à
la fin du transcrit de manière post-transcriptionnelle. La poly A polymérase fonctionne sans
matrice et ajoute les nucléotides les uns après les
autres, en utilisant l’ATP comme substrat : polyadénylation. La fonction de ce processus, absent
chez les Procaryotes, reste encore mal définie :
rôle dans le transport hors du noyau, protection
du message en 3’, contrôle de la durée de vie de
la molécule… On sait cependant que cette queue
est graduellement raccourcie dès que l’ARNm
entre dans le cytoplasme ; la question de la stabilité des ARNm sera évoquée plus loin.
La molécule ainsi obtenue, contenant les
séquences introniques et chimiquement modifiée à
ses extrémités, constitue le transcrit primaire et
c’est elle qui va subir les étapes suivantes de la
maturation. En fait, les événements d’excisionépissage que l’on décrira plus loin commencent à
se produire dans la région 5’, avant que le transcrit
complet soit terminé. Cette idée est suggérée par
les images de microscopie électronique montrant
des particules protéiques collées le long de l’ARN
en cours de synthèse, parmi lesquelles celles intervenant sans doute dans ces processus. La présentation en deux temps des phénomènes de maturation, qui est adoptée ici, est donc arbitraire mais
les événements sont ainsi plus simples à décrire.
• Processus d’excision et d’épissage : ils consistent à enlever successivement les séquences introniques des transcrits et à rabouter de façon précise
les séquences exoniques retrouvées dans l’ARNm
définitif. Ces deux phénomènes nucléaires sont
responsables du raccourcissement, parfois considérable, des ARN initialement transcrits ; ils
n’affectent pas les extrémités 5’ et 3’ qui restent
inchangées dans les ARN nucléaires et les ARN
cytoplasmiques qui en dérivent. Ces modifications
internes des molécules (découvertes en 1977)
étaient totalement inattendues par les chercheurs,
depuis longtemps intrigués par l’intense métabolisme des ARN au sein du noyau, décrit plus haut.
L’excision et l’épissage se réalisent grâce à
quatre types de particules ribonucléoprotéiques
qui s’associent aux ARN prémessagers naissants,
et contiennent les sn RNA signalés plus haut, ainsi
qu’une dizaine de protéines chacune. Celles-ci forment les complexes d’épissage, qui sont un peu
moins gros que des ribosomes, et réalisent les opérations en deux temps. Certaines de ces particules
sont d’abord capables de reconnaître des séquences
consensus spécifiques marquant la limite entre les
introns et les exons ( jonctions exon-intron). Cette
reconnaissance s’effectue grâce aux ARN propres
8. E XPRESSION DES G È NES NUCLÉAIRES CHEZ LES EUCARYOTES.A SPECTS CELLULAIRES ET MOLÉCULAIRES 227
© Dunod – La photocopie non autorisée est un délit.
coiffe 5'
exon 1
intron 1
exon 2
intron 2
exon 3
ARN prémessager
queue de poly A
séquence de tête
non traduite
ARN messager
UAG
UGA
queue de poly A
séquence de
queue non traduite
3' OH
UAA AAUAAA
COOH
H N
2
protéine
coiffe 5' AUG
intron 1
intron 2
3'OH
AG GU
AG G
AG GU AG G
AAAAAA
AAAAAA
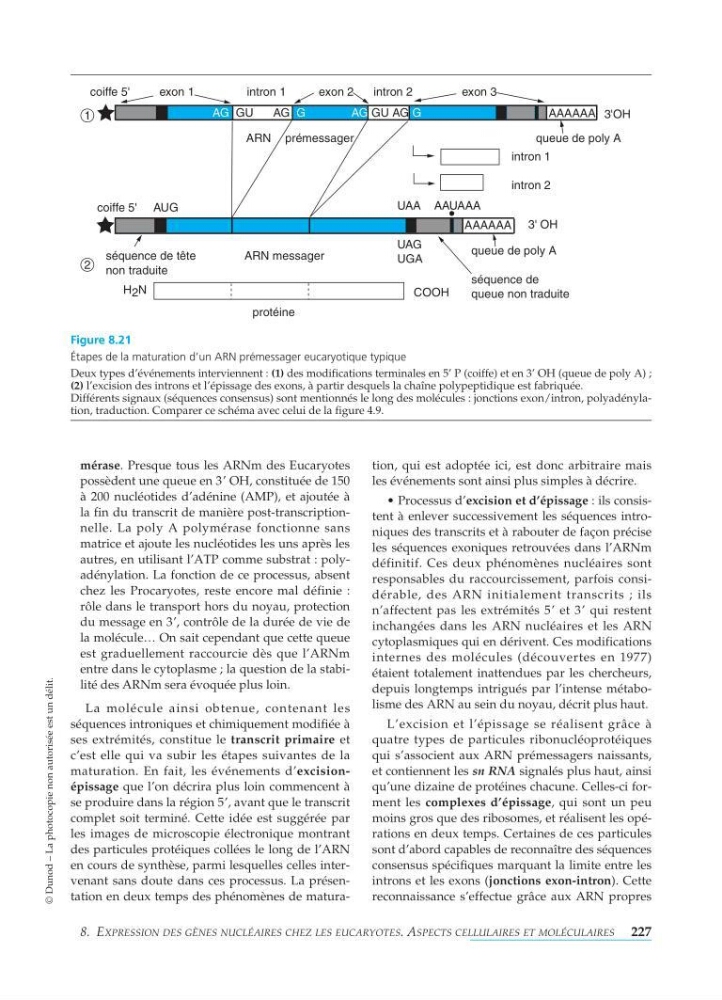
Figure 8.21
Étapes de la maturation d’un ARN prémessager eucaryotique typique
Deux types d’événements interviennent : (1) des modifications terminales en 5’ P (coiffe) et en 3’ OH (queue de poly A) ;
(2) l’excision des introns et l’épissage des exons, à partir desquels la chaîne polypeptidique est fabriquée.
Différents signaux (séquences consensus) sont mentionnés le long des molécules : jonctions exon/intron, polyadénylation, traduction. Comparer ce schéma avec celui de la figure 4.9.
1
2
coiffe