

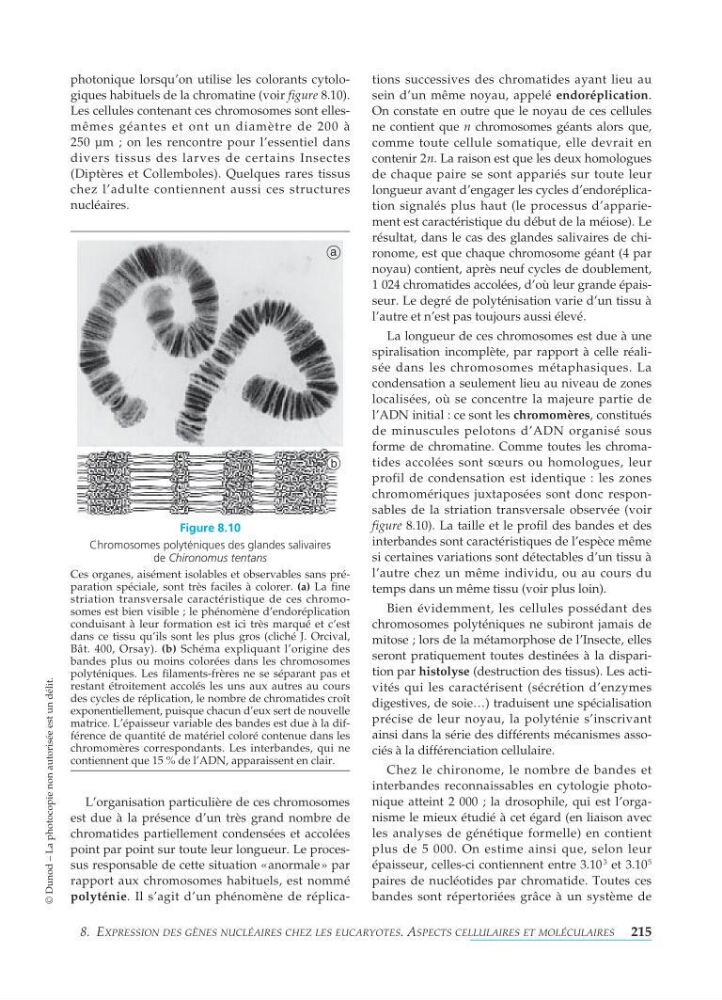
photonique lorsqu’on utilise les colorants cytologiques habituels de la chromatine (voir figure 8.10).
Les cellules contenant ces chromosomes sont ellesmêmes géantes et ont un diamètre de 200 à
250 µm ; on les rencontre pour l’essentiel dans
divers tissus des larves de certains Insectes
(Diptères et Collemboles). Quelques rares tissus
chez l’adulte contiennent aussi ces structures
nucléaires.
L’organisation particulière de ces chromosomes
est due à la présence d’un très grand nombre de
chromatides partiellement condensées et accolées
point par point sur toute leur longueur. Le processus responsable de cette situation «anormale » par
rapport aux chromosomes habituels, est nommé
polyténie. Il s’agit d’un phénomène de réplications successives des chromatides ayant lieu au
sein d’un même noyau, appelé endoréplication.
On constate en outre que le noyau de ces cellules
ne contient que n chromosomes géants alors que,
comme toute cellule somatique, elle devrait en
contenir 2 n . La raison est que les deux homologues
de chaque paire se sont appariés sur toute leur
longueur avant d’engager les cycles d’endoréplication signalés plus haut (le processus d’appariement est caractéristique du début de la méiose). Le
résultat, dans le cas des glandes salivaires de chironome, est que chaque chromosome géant (4 par
noyau) contient, après neuf cycles de doublement,
1 024 chromatides accolées, d’où leur grande épaisseur. Le degré de polyténisation varie d’un tissu à
l’autre et n’est pas toujours aussi élevé.
La longueur de ces chromosomes est due à une
spiralisation incomplète, par rapport à celle réalisée dans les chromosomes métaphasiques. La
condensation a seulement lieu au niveau de zones
localisées, où se concentre la majeure partie de
l’ADN initial : ce sont les chromomères, constitués
de minuscules pelotons d’ADN organisé sous
forme de chromatine. Comme toutes les chromatides accolées sont sœurs ou homologues, leur
profil de condensation est identique : les zones
chromomériques juxtaposées sont donc responsables de la striation transversale observée (voir
figure 8.10). La taille et le profil des bandes et des
interbandes sont caractéristiques de l’espèce même
si certaines variations sont détectables d’un tissu à
l’autre chez un même individu, ou au cours du
temps dans un même tissu (voir plus loin).
Bien évidemment, les cellules possédant des
chromosomes polyténiques ne subiront jamais de
mitose ; lors de la métamorphose de l’Insecte, elles
seront pratiquement toutes destinées à la disparition par histolyse (destruction des tissus). Les activités qui les caractérisent (sécrétion d’enzymes
digestives, de soie…) traduisent une spécialisation
précise de leur noyau, la polyténie s’inscrivant
ainsi dans la série des différents mécanismes associés à la différenciation cellulaire.
Chez le chironome, le nombre de bandes et
interbandes reconnaissables en cytologie photonique atteint 20 00 ; la drosophile, qui est l’organisme le mieux étudié à cet égard (en liaison avec
les analyses de génétique formelle) en contient
plus de 5 000. On estime ainsi que, selon leur
épaisseur, celles-ci contiennent entre 3.10
3
et 3.10
5
paires de nucléotides par chromatide. Toutes ces
bandes sont répertoriées grâce à un système de
8. E XPRESSION DES G È NES NUCLÉAIRES CHEZ LES EUCARYOTES.A SPECTS CELLULAIRES ET MOLÉCULAIRES 215
© Dunod – La photocopie non autorisée est un délit.
Figure 8.10
Chromosomes polyténiques des glandes salivaires
de Chironomus tentans
Ces organes, aisément isolables et observables sans préparation spéciale, sont très faciles à colorer. (a) La fine
striation transversale caractéristique de ces chromosomes est bien visible ; le phénomène d’endoréplication
conduisant à leur formation est ici très marqué et c’est
dans ce tissu qu’ils sont les plus gros (cliché J. Orcival,
Bât. 400, Orsay). (b) Schéma expliquant l’origine des
bandes plus ou moins colorées dans les chromosomes
polyténiques. Les filaments-frères ne se séparant pas et
restant étroitement accolés les uns aux autres au cours
des cycles de réplication, le nombre de chromatides croît
exponentiellement, puisque chacun d’eux sert de nouvelle
matrice. L’épaisseur variable des bandes est due à la différence de quantité de matériel coloré contenue dans les
chromomères correspondants. Les interbandes, qui ne
contiennent que 15 % de l’ADN, apparaissent en clair.
a
b