

seur : ce sont les nucléosomes. On appelle nucléofilament cette fibre élémentaire constituant la
chromatine.
L’interaction entre ADN et histones est peu spécifique ; elle s’établit entre les charges négatives
portées par le squelette sucre-phosphate de chaque
brin de la double hélice et les charges positives des
acides aminés de ces protéines. Deux nucléosomes
sont séparés par une longueur moyenne d’environ
60 paires de bases d’ADN nu (lien internucléosomique). L’ADN subit de cette façon une première
condensation (146 paires de bases =4 9,6 nm de
long, comparés à 10 nm) ; cette structure constitue,
à la manière d’une bobine de fil, le premier niveau
d’empaquetage de l’ADN. Il faut se souvenir que
dans un noyau somatique humain de 5-10 µm de
diamètre, il faut faire entrer 1,8 mètre d’ADN, ce
qui représente environ 3.10
7
nucléosomes.
1.2.3. L AF IBRE NUCLÉOSOMIQUE
ET LES ÉDIFICES D ’ ORDRE SUPÉRIEUR
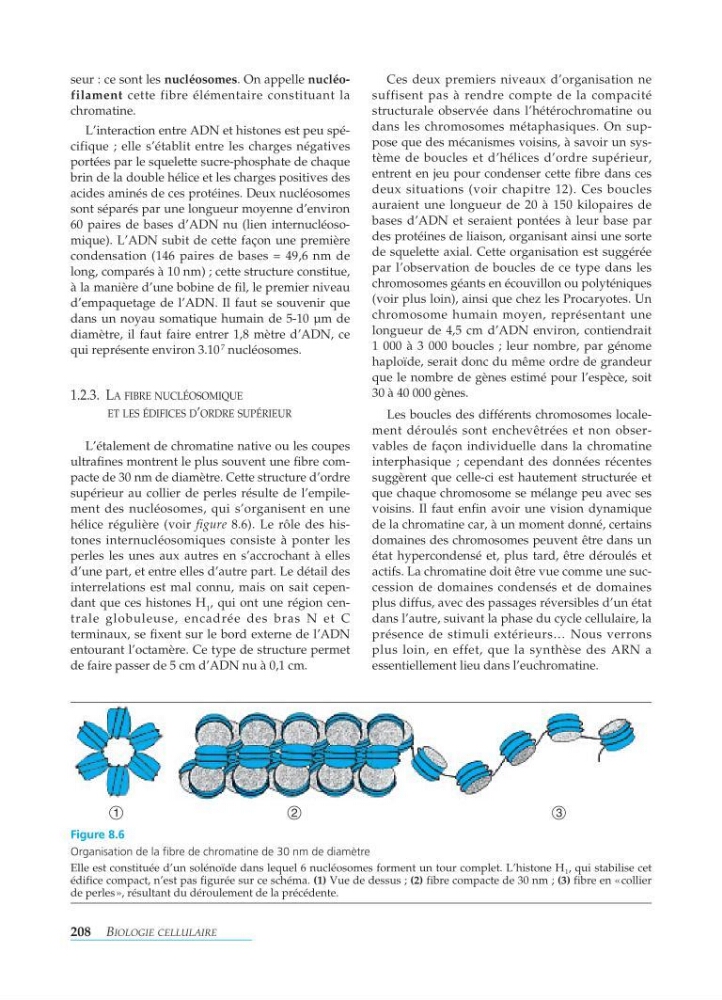
L’étalement de chromatine native ou les coupes
ultrafines montrent le plus souvent une fibre compacte de 30 nm de diamètre. Cette structure d’ordre
supérieur au collier de perles résulte de l’empilement des nucléosomes, qui s’organisent en une
hélice régulière (voir figure 8.6). Le rôle des histones internucléosomiques consiste à ponter les
perles les unes aux autres en s’accrochant à elles
d’une part, et entre elles d’autre part. Le détail des
interrelations est mal connu, mais on sait cependant que ces histones H 1 , qui ont une région centrale globuleuse, encadrée des bras N et C
terminaux, se fixent sur le bord externe de l’ADN
entourant l’octamère. Ce type de structure permet
de faire passer de 5cm d’ADN nu à 0,1 cm.
Ces deux premiers niveaux d’organisation ne
suffisent pas à rendre compte de la compacité
structurale observée dans l’hétérochromatine ou
dans les chromosomes métaphasiques. On suppose que des mécanismes voisins, à savoir un système de boucles et d’hélices d’ordre supérieur,
entrent en jeu pour condenser cette fibre dans ces
deux situations (voir chapitre 12). Ces boucles
auraient une longueur de 20 à 150 kilopaires de
bases d’ADN et seraient pontées à leur base par
des protéines de liaison, organisant ainsi une sorte
de squelette axial. Cette organisation est suggérée
par l’observation de boucles de ce type dans les
chromosomes géants en écouvillon ou polyténiques
(voir plus loin), ainsi que chez les Procaryotes. Un
chromosome humain moyen, représentant une
longueur de 4,5 cm d’ADN environ, contiendrait
10 00 à 30 00 boucles ; leur nombre, par génome
haploïde, serait donc du même ordre de grandeur
que le nombre de gènes estimé pour l’espèce, soit
30 à 40 000 gènes.
Les boucles des différents chromosomes localement déroulés sont enchevêtrées et non observables de façon individuelle dans la chromatine
interphasique ; cependant des données récentes
suggèrent que celle-ci est hautement structurée et
que chaque chromosome se mélange peu avec ses
voisins. Il faut enfin avoir une vision dynamique
de la chromatine car, à un moment donné, certains
domaines des chromosomes peuvent être dans un
état hypercondensé et, plus tard, être déroulés et
actifs. La chromatine doit être vue comme une succession de domaines condensés et de domaines
plus diffus, avec des passages réversibles d’un état
dans l’autre, suivant la phase du cycle cellulaire, la
présence de stimuli extérieurs… Nous verrons
plus loin, en effet, que la synthèse des ARN a
essentiellement lieu dans l’euchromatine.
208 B IOLOGIE CELLULAIRE
Figure 8.6
Organisation de la fibre de chromatine de 30 nm de diamètre
Elle est constituée d’un solénoïde dans lequel 6n ucléosomes forment un tour complet. L’histone H 1 , qui stabilise cet
édifice compact, n’est pas figurée sur ce schéma. (1) Vue de dessus ; (2) fibre compacte de 30 nm ; (3) fibre en «collier
de perles », résultant du déroulement de la précédente.
1
2
3