

1.2.2. H ISTONES ET NUCLÉOSOMES
Les cinq types différents d’histones ont en commun les propriétés suivantes :1) petite masse moléculaire (MM de 11 à 24 kDa), 2) grande richesse en
acides aminés basiques (lysine et arginine : 20 à
30 %) chargés positivement, et 3) grande conservation évolutive (sauf pour H 1 ). Ces molécules sont
présentes en quantités à peu près équimolaires, et
se répartissent en deux familles : H 2 A, H 2 B, H 3 , H 4
(102-135 acides aminés) et H 1 (210-220 acides aminés) ; les premières sont dites «nucléosomiques »,
la dernière est dite «internucléosomique ». Contrairement aux quatre autres histones, il existe plusieurs variétés d’histone H 1 chez un organisme
donné ; on en connaît six différentes, par exemple,
dans les cellules de Mammifères.
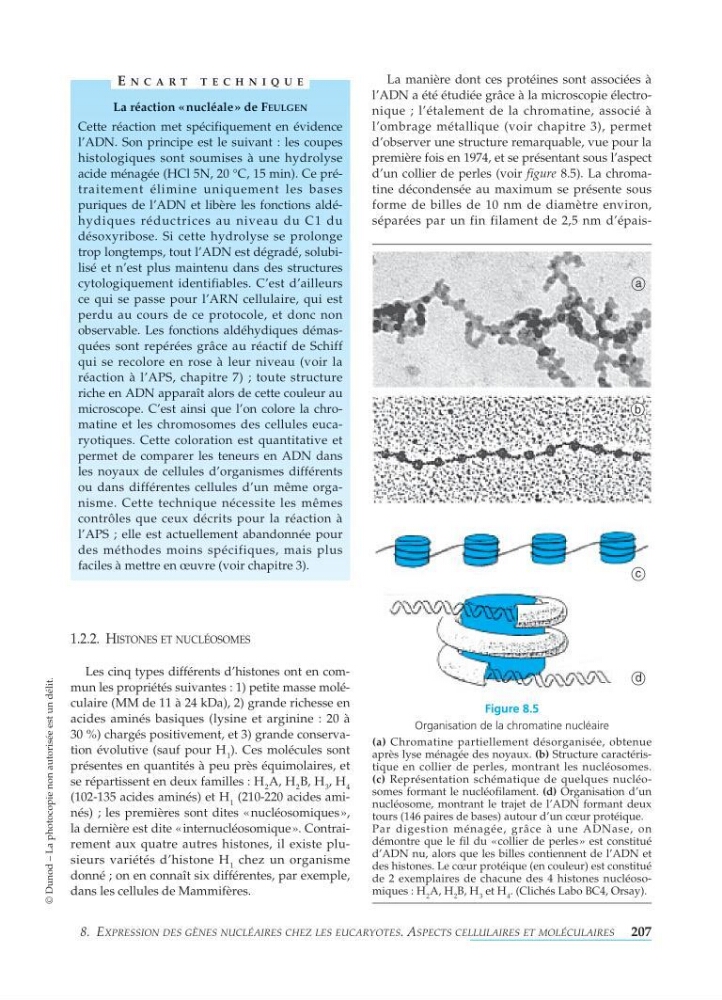
La manière dont ces protéines sont associées à
l’ADN a été étudiée grâce à la microscopie électronique ; l’étalement de la chromatine, associé à
l’ombrage métallique (voir chapitre 3), permet
d’observer une structure remarquable, vue pour la
première fois en 1974, et se présentant sous l’aspect
d’un collier de perles (voir figure 8.5). La chromatine décondensée au maximum se présente sous
forme de billes de 10 nm de diamètre environ,
séparées par un fin filament de 2,5 nm d’épais8. E XPRESSION DES G È NES NUCLÉAIRES CHEZ LES EUCARYOTES.A SPECTS CELLULAIRES ET MOLÉCULAIRES 207
© Dunod – La photocopie non autorisée est un délit.
La réaction «nucléale» de F EULGEN
Cette réaction met spécifiquement en évidence
l’ADN. Son principe est le suivant : les coupes
histologiques sont soumises à une hydrolyse
acide ménagée (HCl 5N, 20 °C, 15 min). Ce prétraitement élimine uniquement les bases
puriques de l’ADN et libère les fonctions aldéhydiques réductrices au niveau du C1 du
désoxyribose. Si cette hydrolyse se prolonge
trop longtemps, tout l’ADN est dégradé, solubilisé et n’est plus maintenu dans des structures
cytologiquement identifiables. C’est d’ailleurs
ce qui se passe pour l’ARN cellulaire, qui est
perdu au cours de ce protocole, et donc non
observable. Les fonctions aldéhydiques démasquées sont repérées grâce au réactif de Schiff
qui se recolore en rose à leur niveau (voir la
réaction à l’APS, chapitre 7) ; toute structure
riche en ADN apparaît alors de cette couleur au
microscope. C’est ainsi que l’on colore la chromatine et les chromosomes des cellules eucaryotiques. Cette coloration est quantitative et
permet de comparer les teneurs en ADN dans
les noyaux de cellules d’organismes différents
ou dans différentes cellules d’un même organisme. Cette technique nécessite les mêmes
contrôles que ceux décrits pour la réaction à
l’APS ; elle est actuellement abandonnée pour
des méthodes moins spécifiques, mais plus
faciles à mettre en œuvre (voir chapitre 3).
E NCARTT ECHNIQUE
Figure 8.5
Organisation de la chromatine nucléaire
(a) Chromatine partiellement désorganisée, obtenue
après lyse ménagée des noyaux. (b) Structure caractéristique en collier de perles, montrant les nucléosomes.
(c) Représentation schématique de quelques nucléosomes formant le nucléofilament. (d) Organisation d’un
nucléosome, montrant le trajet de l’ADN formant deux
tours (146 paires de bases) autour d’un cœur protéique.
Par digestion ménagée, grâce à une ADNase, on
démontre que le fil du «collier de perles» est constitué
d’ADN nu, alors que les billes contiennent de l’ADN et
des histones. Le cœur protéique (en couleur) est constitué
de 2e xemplaires de chacune des 4h istones nucléosomiques : H 2 A, H 2 B, H 3 et H 4 . (Clichés Labo BC4, Orsay).
a
c
d
b