

10
8
Da), formée de chaînes du même type, mais
comportant de nombreux branchements latéraux
(liaisons α 1 → 6, tous les 20-30 résidus).
• Les oléoplastes (ou élaïoplastes) et les protéoplastes sont des plastes spécialisés respectivement
dans l’accumulation de lipides et de protéines. En
marge de ces organites, on peut mentionner les
leucoplastes, non pigmentés, qui sont observés
dans des cellules sécrétrices d’essences ou de
résines (chez le pin, par exemple) ; ces derniers ne
semblent pas avoir de fonction de réserve.
• Les parois épaissies des cellules végétales servent parfois de lieu de stockage de glucides, sous
forme de polysaccharides particuliers. Dans le cas,
par exemple, de l’albumen de nombreuses graines :
dattier, et de plusieurs familles : Liliacées, Rubiacées, etc., on trouve des polymères du mannose
(mannanes). Dans les parois des cellules cotylédonaires des embryons de Légumineuses, existent
des polymères à base de glucose, galactose et xylose
(xyloglucanes). Tous ces composés sont hydrolysés lors de l’hydratation de la graine, et les produits d’hydrolyse sont utilisés par l’embryon en
croissance.
• Les vacuoles des cellules végétales, des
Champignons et des Algues, mettent en réserve
des petites molécules (sucres, acides organiques et
acides aminés) ou des macromolécules (protéines,
sous la forme des grains d’aleurone dans certaines
cellules, inuline ; voir paragraphe 4.2).
2.2. Métabolismes et mécanismes conduisant
à l’accumulation des réserves
Afin de comprendre l’origine de certaines des
structures de réservep récédemment signalées, il
est utile de compléter cette description par quelques informations biochimiques. Seuls de simples
rappels peuvent être donnés dans le cadre de cet
ouvrage ; ils permettent cependant d’illustrer une
notion importante en biochimie, à savoir la nécessité d’un couplage entre des réactions thermodynamiquement favorisées (exergoniques), comme
l’hydrolyse des molécules «riches en énergie»:
ATP, UTP etc., et des réactions qui consomment de
l’énergie (endergoniques), telles que celles intervenant dans l’anabolisme. La polymérisation des
macromolécules implique toujours en fait des précurseurs préalablement activés par des nucléotides
(ou des nucléotides eux-mêmes, évidemment, s’il
s’agit de la synthèse des acides nucléiques).
2.2.1. S TOCKAGE DE MOLÉCULES
ÀR ÔLE ÉNERGÉTIQUE DIRECT
Il n’y a pas de stockage d’ATP dans les cellules
ou les organismes. Cette impossibilité est liée au
fait qu’une quantité considérable de celui-ci doit
être hydrolysée, pour assurer toutes les activités
cellulaires. Chez l’Homme, par exemple, on calcule
que la consommation quotidienne de ce nucléotide
est d’au moins 40 kg, d’où la nécessité d’un renouvellement constant. Il existe cependant quelques
7. N UTRITION ET CROISSANCE DES CELLULES.U TILISATION DES MÉTABOLITES 181
© Dunod – La photocopie non autorisée est un délit.
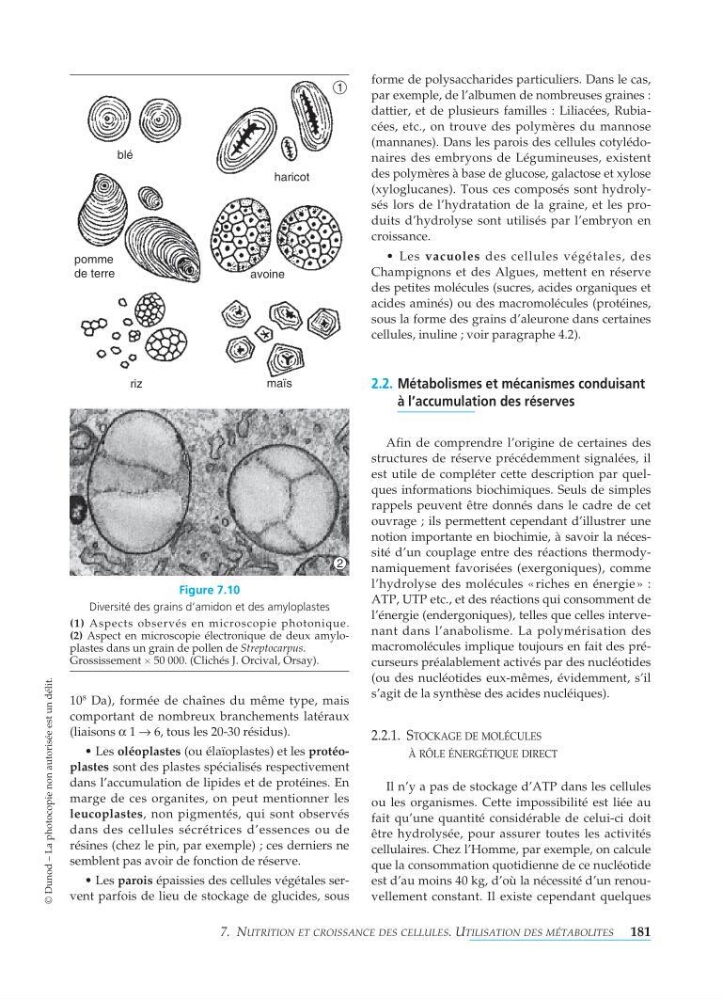
Figure 7.10
Diversité des grains d’amidon et des amyloplastes
(1) Aspects observés en microscopie photonique.
(2) Aspect en microscopie électronique de deux amyloplastes dans un grain de pollen de Streptocarpus .
Grossissement 50 000. (Clichés J. Orcival, Orsay).
blé
pomme
de terre
avoine
riz
maïs
haricot
1
2