

7. N UTRITION ET CROISSANCE DES CELLULES.U TILISATION DES MÉTABOLITES 177
© Dunod – La photocopie non autorisée est un délit.
substances forment des structures atteignant une
taille suffisante, elles deviennent visibles au microscope ; on les nomme parfois enclaves inertes,
leur ensemble formant le paraplasme. Elles se présentent sous forme de granulations ou de gouttelettes non limitées par des membranes, dont on
peut identifier la nature précise grâce à des tests
cytochimiques, tels que le test à l’APS, qui sera
décrit plus loin. Chez les Végétaux, on inclut parfois la paroi dans le paraplasme.
• Chez les Bactéries, lorsque les sources alimentaires sont abondantes et équilibrées, il n’y a pas
d’accumulation de réserves ; seules une croissance
active et une mutiplication cellulaire sont alors
observées. En revanche, dans un milieu riche en
substrat carboné mais déficient en azote, elles tendent à accumuler des polymères qui représentent
jusqu’à 50 % du poids sec des cellules. Selon leur
composition et leur rôle physiologique, on distingue trois types de composés : 1) des polymères
organiques, qui servent de réserve de carbone et
d’énergie, 2) des polymères inorganiques, et 3) du
soufre élémentaire, plus rarement du fer.
Les macromolécules organiques sont le plus
souvent représentées par le glycogène, parfois
l’amidon ou l’acide poly-H -hydroxybutyrique,
visibles sous forme de granules dans le cytoplasme. Les deux premiers, dont la composition
sera rappelée plus loin, sont des formes de stockage du glucose ( polysaccharides);le dernier est
un composé non lipidique mais fixant cependant
les colorants spécifiques des graisses. Chez les
Bactéries, la nature des réserves est en général
caractéristique d’une espèce ou d’un groupe, et elle
constitue souvent un bon critère taxinomique. Par
exemple, le glycogène est rencontré chez les
Entérobactéries ou les Cyanobactéries, les Bactéries
pourpres accumulent à la fois le glycogène et
l’acide poly-β -hydroxybutyrique, etc.
La volutine est un polymère inorganique (polyphosphate), qui est utilisé comme réserve d’orthophosphate, pour la fabrication des acides
nucléiques, par exemple. Ce composé spécifique
des Bactéries se présente sous forme de granulations colorables en rouge par le bleu de toluidine.
Chez les Sulfobactéries photosynthétiques pourpres, qui utilisent l’H 2 S comme donneur d’électrons, on observe des granules de soufre très
réfringents, au sein du cytoplasme, résultant de
l’oxydation de ce dernier. Ils y sont accumulés
lorsque l’H 2 S est abondant, et constituent une
réserve d’énergie car le soufre peut également être
oxydé en sulfates (voir figure 7.6). Des observations équivalentes sont faites chez les Bactéries qui
stockent et oxydent le fer. Enfin, une réserve
d’azote, sous la forme d’acides aminés polymérisés en longs polypeptides, organisés en grosses
glucose
AT P
ADP
AT P
ADP
P i
H 2 O
P i
H 2 O
glucose 6-phosphate
fructose 6-phosphate
fructose 1,6-bis phosphate
hexokinase
glucose
6-phosphatase
fructose
bisphosphatase
phosphofructokinase
glycéraldéhyde
3-phosphate
Dihydroxyacétone
phosphate
P i
NAD +
NADH + H +
1,3-bisphosphoglycérate
ADP
AT P
3-phosphoglycérate
2-phosphoglycérate
H O
2
phosphoénolpyruvate
CO 2
GTP
oxaloacétate
NAD
+
malate
malate
oxaloacétate
pyruvate
pyruvate
mitochondrie
ADP
AT P
pyruvate
kinase
NADH
CO 2 AT P pyruvate carboxylase
phosphoénolpyruvate
carboxykinase
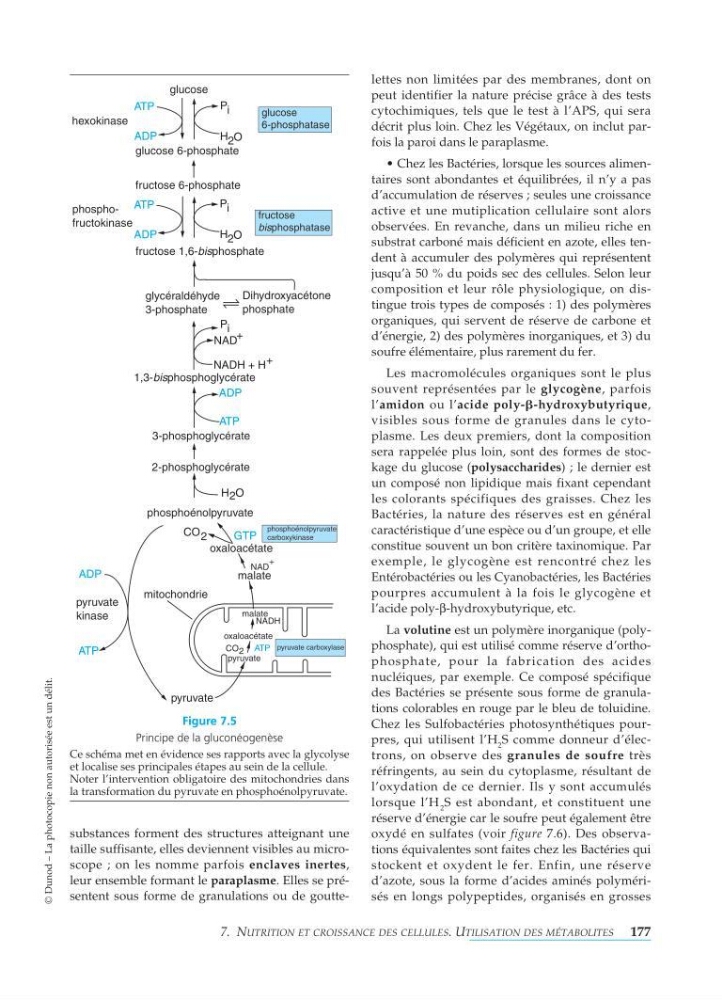
Figure 7.5
Principe de la gluconéogenèse
Ce schéma met en évidence ses rapports avec la glycolyse
et localise ses principales étapes au sein de la cellule.
Noter l’intervention obligatoire des mitochondriesd ans
la transformation du pyruvate en phosphoénolpyruvate.