

176 B IOLOGIE CELLULAIRE
viennent dans ce système au niveau des
échanges de pyruvate et de malate entre hyaloplasme et mitochondrie ; cette membrane est en
effet imperméable à l’oxaloacétate, intermédiaire
obligé qui n’a pas de transporteur propre, et ceci
est résolu par le système complexe décrit dans la
figure 7.5.
2. ACCUMULATION ET
DÉGRADATION DES RÉSERVES
CHEZ LES PROCARYOTES ET
LES EUCARYOTES
L’anabolisme, qui conduit à la synthèse de nouvelle matière vivante, permet non seulement le
renouvellement de celle-ci et la croissance cellulaire, mais aussi la production de réserves alimentaires et énergétiques ; celles-ci seront utilisées
ultérieurement par les cellules, en cas de pénurie.
Après dégradation, elles fournissent aux cellules
des métabolites que l’on retrouve le plus souvent
dans les voies du catabolisme énergétique. Les
réserves se présentent en général sous forme de
macromolécules insolubles dans l’eau ; celles-ci
constituent en effet un mode de stockage efficace
de monomères, car elles n’augmentent pas la pression osmotique interne des cellules, comme le ferait
une quantité équivalente de monomères en solution (composés osmotiquement inertes).
2.1. Structures de réserve
chez les Procaryotes et les Eucaryotes
Les macromolécules servant de réserve présentent une composition chimique très variée ; elles
peuvent former des structures rencontrées directement dans le hyaloplasme, ou bien être accumulées au sein d’organites spécialisés, dérivant le
plus souvent d’organites classiques, mais dont le
fonctionnement est dévié dans le sens d’un stockage à court ou long terme. La nature des réserves
dépend donc non seulement du type cellulaire,
mais aussi de son état physiologique, de son âge et
de nombreux paramètres environnementaux.
2.1.1. R ÉSERVES ACCUMULÉES AU SEIN
DU HYALOPLASME
Les cellules accumulent, directement au sein de
leur hyaloplasme, des matériaux organiques (et
inorganiques) constituant généralement des réserves d’énergie, mais aussi des réserves de chaînons
carbonés pour alimenter l’anabolisme. Lorsque ces
pyruvate
acétyl-CoA
acétoacétyl-CoA
oxaloacétate
fumarate
succinate
succinyl-CoA
α -cétoglutarate
isocitrate
citrate
malate
cycle
de
Krebs
glutamate
arginine
histidine
glutamine
proline
isoleucine
méthionine
valine
tyrosine
phénylalanine
alanine
cystéine
glycocolle
sérine
thréonine
isoleucine
leucine
tryptophane
phénylalanine
tyrosine
leucine
lysine
tryptophane
aspartate
asparagine
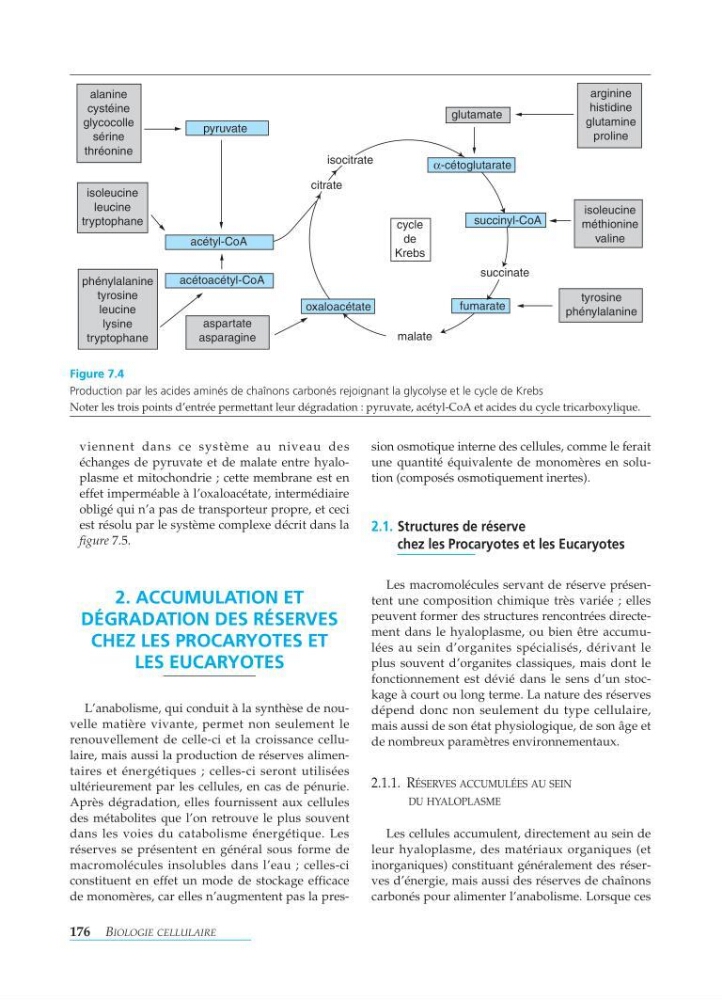
Figure 7.4
Production par les acides aminés de chaînons carbonés rejoignant la glycolyse et le cycle de Krebs
Noter les trois points d’entrée permettant leur dégradation:pyruvate, acétyl-CoA et acides du cycle tricarboxylique.