

lulaire (et le métabolisme en général), et justifie
l’énorme dépense énergétique effectuée par les cellules, dans ce but.
• Le transporteur bactérien du lactose. Il existe,
chez les Bactéries, un transporteur spécifique du
lactose qui fonctionne comme le symport précédent, mais en utilisant un gradient moteur d’ions
H
+
(voir p. 91) Ceux-ci sont plus concentrés à
l’extérieur de la cellule qu’à l’intérieur car des
pompes appartenant à la membrane plasmique,
mues par l’ATP ou les réactions d’oxydoréduction,
interviennent ici aussi ; le retour des ions H
+
vers
le cytoplasme permet l’importation du lactose à
raison d’un ion pour une molécule. La protéine
responsable de ce cotransport est constituée d’une
chaîne polypeptidique d’environ 400 acides aminés, traversant plusieurs fois la bicouche lipidique
(douze aller et retour en α hélice). Un grand
nombre de transporteurs actifs de ce type ont été
mis en évidence chez les Bactéries : ils servent
aussi à importer les sucres, les acides aminés ou
les acides organiques…, nécessaires au métabolisme.
• Les échangeurs commandés par le gradient
d’ions H
+
présents dans la membrane plasmique
des cellules végétales. Celle-ci contient de nombreux transporteurs destinés à importer des molécules organiques, dont le fonctionnement est
semblable à celui des exemples précédents. Il faut
aussi signaler l’existence d’un symport H
+
/K
+
servant à faire entrer activement ce dernier ion dans
la cellule. Ce système permet sans doute de
contrôler la pression osmotique interne et de
maintenir la turgescence à un niveau suffisant,
malgré les variations du milieu extérieur.
• L’antiport Na
+
/H
+
des cellules de Vertébrés.
Dans presque toutes les cellules de ces organismes, il existe une protéine échangeuse de
cations d’un type voisin de la précédente, qui
intervient pour contrôler le pH intracellulaire.
Grâce à ce système d’échange, un excès interne
d’ions H
+
(lié au métabolisme cellulaire) est supprimé par une sortie de ces derniers, couplée à un
influx d’ions Na
+
. Cette protéine est régulée par le
pH, au niveau d’un site de fixation de H
+
situé du
côté cytoplasmique : si le pH dépasse 7,7 à l’intérieur de la cellule, la molécule est inactivée, le flux
sortant d’ions H
+
stoppé, et le cytoplasme retourne
à la neutralité.
• L’échangeur d’anions HCO 3
–
/Cl
–
des hématies
de Mammifères. La protéine la plus abondante de
leur membrane plasmique (dite aussi «bande 3»,
sur les gels d’électrophorèse) est un transporteur
d’ions dont le rôle est capital dans le cadre des
échanges gazeux que ces cellules assurent. Le CO 2
produit par les tissus rentre dans les hématies où il
est enzymatiquement transformé en HCO 3
–
; ce
dernier en sort grâce à cet échangeur d’anions qui
fait simultanément entrer un ion Cl
–
. Au niveau
des poumons, les réactions inverses ont lieu : le
CO 2 étant éliminé des hématies, les ions HCO 3
–
dissous en grande quantité dans le plasma entrent
dans celles-ci, où ils sont à nouveau échangés
contre des ions Cl
–
. Ce processus inverse d’antiport est réalisé grâce à la même protéine, dont le
fonctionnement est donc totalement réversible.
156 B IOLOGIE CELLULAIRE
Na +
Na +
glucose
Na +
Na +
K +
K +
glucose
glucose
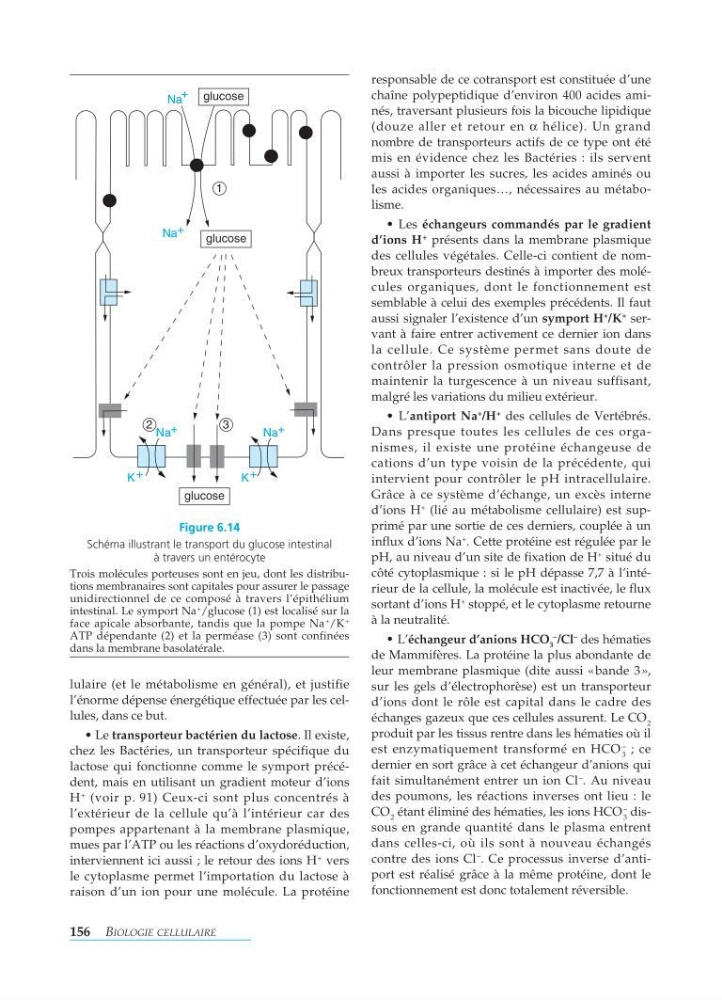
Figure 6.14
Schéma illustrant le transport du glucose intestinal
à travers un entérocyte
Trois molécules porteuses sont en jeu, dont les distributions membranaires sont capitales pour assurer le passage
unidirectionnel de ce composé à travers l’épithélium
intestinal. Le symport Na
+
/glucose (1) est localisé sur la
face apicale absorbante, tandis que la pompe Na
+
/K
+
ATP dépendante (2) et la perméase (3) sont confinées
dans la membrane basolatérale.
1
2
3