

2.5.5. T RANSPORTS ACTIFS SECONDAIRES
Contrairement aux molécules porteuses précédentes, les transporteurs assurant un transport
actif dit secondaire n’utilisent pas l’hydrolyse de
l’ATP comme source directe d’énergie. Ils sont
néanmoins dits actifs car ils peuvent transporter
des ions ou des molécules organiques contre leur
gradient de concentration ; ceci est réalisé grâce au
couplage de ce transport à celui d’un autre composé qui, lui, se déplace spontanément dans le sens
de son gradient. En règle générale, ce deuxième
composé, qui agit comme moteur, est un ion présentant un fort gradient de concentration (ions
Na
+
, dans le cas des cellules animales, ou H
+
, dans
le cas des cellules végétales ou des Bactéries), qui
est entretenu, on l’a vu, par des pompes utilisant
l’ATP ou des réactions d’oxydoréduction. En fait,
un transporteur actif de ce type utilise une source
d’énergie indirecte (ou potentielle), stockée sous la
forme d’un gradient ionique.
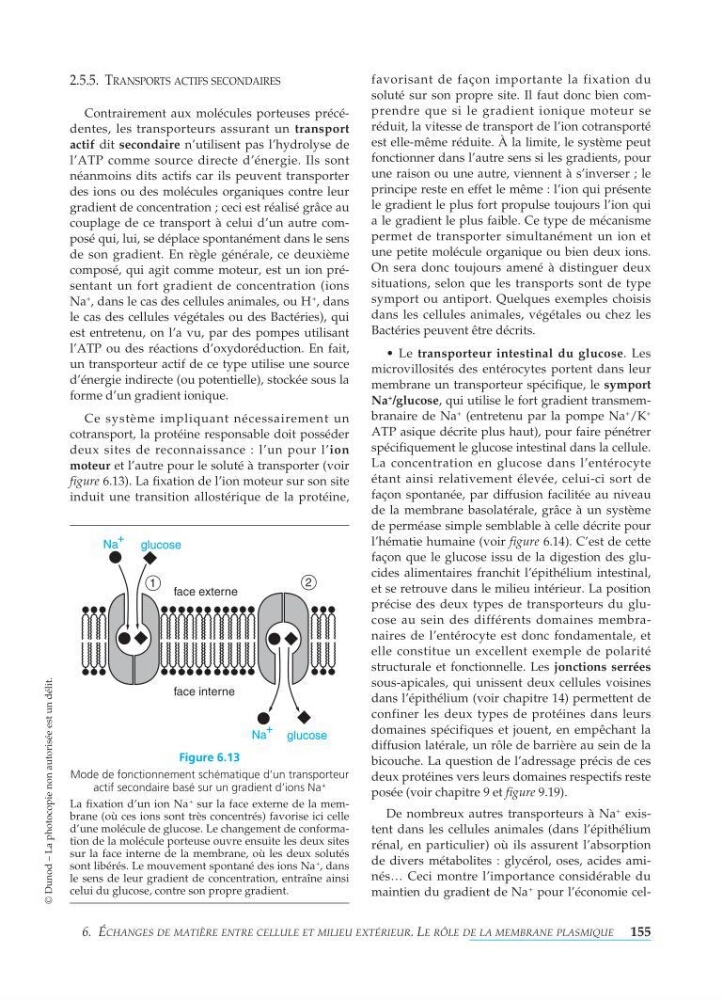
Ce système impliquant nécessairement un
cotransport, la protéine responsable doit posséder
deux sites de reconnaissance : l’un pour l’ion
moteur et l’autre pour le soluté à transporter (voir
figure 6.13). La fixation de l’ion moteur sur son site
induit une transition allostérique de la protéine,
favorisant de façon importante la fixation du
soluté sur son propre site. Il faut donc bien comprendre que si le gradient ionique moteur se
réduit, la vitesse de transport de l’ion cotransporté
est elle-même réduite. À la limite, le système peut
fonctionner dans l’autre sens si les gradients, pour
une raison ou une autre, viennent à s’inverser ; le
principe reste en effet le même : l’ion qui présente
le gradient le plus fort propulse toujours l’ion qui
a le gradient le plus faible. Ce type de mécanisme
permet de transporter simultanément un ion et
une petite molécule organique ou bien deux ions.
On sera donc toujours amené à distinguer deux
situations, selon que les transports sont de type
symport ou antiport. Quelques exemples choisis
dans les cellules animales, végétales ou chez les
Bactéries peuvent être décrits.
• Le transporteur intestinal du glucose. Les
microvillosités des entérocytes portent dans leur
membrane un transporteur spécifique, le symport
Na
+
/glucose, qui utilise le fort gradient transmembranaire de Na
+
(entretenu par la pompe Na
+
/K
+
ATP asique décrite plus haut), pour faire pénétrer
spécifiquement le glucose intestinal dans la cellule.
La concentration en glucose dans l’entérocyte
étant ainsi relativement élevée, celui-ci sort de
façon spontanée, par diffusion facilitée au niveau
de la membrane basolatérale, grâce à un système
de perméase simple semblable à celle décrite pour
l’hématie humaine (voir figure 6.14). C’est de cette
façon que le glucose issu de la digestion des glucides alimentaires franchit l’épithélium intestinal,
et se retrouve dans le milieu intérieur. La position
précise des deux types de transporteurs du glucose au sein des différents domaines membranaires de l’entérocyte est donc fondamentale, et
elle constitue un excellent exemple de polarité
structurale et fonctionnelle. Les jonctions serrées
sous-apicales, qui unissent deux cellules voisines
dans l’épithélium (voir chapitre 14) permettent de
confiner les deux types de protéines dans leurs
domaines spécifiques et jouent, en empêchant la
diffusion latérale, un rôle de barrière au sein de la
bicouche. La question de l’adressage précis de ces
deux protéines vers leurs domaines respectifs reste
posée (voir chapitre 9 et figure 9.19).
De nombreux autres transporteurs à Na
+
existent dans les cellules animales (dans l’épithélium
rénal, en particulier) où ils assurent l’absorption
de divers métabolites : glycérol, oses, acides aminés… Ceci montre l’importance considérable du
maintien du gradient de Na
+
pour l’économie cel6. É CHANGES DE MATIÈ RE ENTRE CELLULE ET MILIEU EXTÉRIEUR.L ER Ô LE DE LA MEMBRANE PLASMIQUE 155
© Dunod – La photocopie non autorisée est un délit.
face interne
face externe
1
2
Na
+
Na
+
glucose
glucose
Figure 6.13
Mode de fonctionnement schématique d’un transporteur
actif secondaire basé sur un gradient d’ions Na
+
La fixation d’un ion Na
+
sur la face externe de la membrane (où ces ions sont très concentrés) favorise ici celle
d’une molécule de glucose. Le changement de conformation de la molécule porteuse ouvre ensuite les deux sites
sur la face interne de la membrane, où les deux solutés
sont libérés. Le mouvement spontané des ions Na
+
, dans
le sens de leur gradient de concentration, entraîne ainsi
celui du glucose, contre son propre gradient.