

6. É CHANGES DE MATIÈ RE ENTRE CELLULE ET MILIEU EXTÉRIEUR.L ER Ô LE DE LA MEMBRANE PLASMIQUE 153
© Dunod – La photocopie non autorisée est un délit.
la cellule, la pompe Na
+
/K
+
tend aussi à abaisser
la pression osmotique interne et à assurer un
volume constant au hyaloplasme. En effet, lorsque
des cellules animales sont traitées par la ouabaïne,
le flux entrant d’eau augmente et elles ont tendance à gonfler (elles peuvent même éclater).
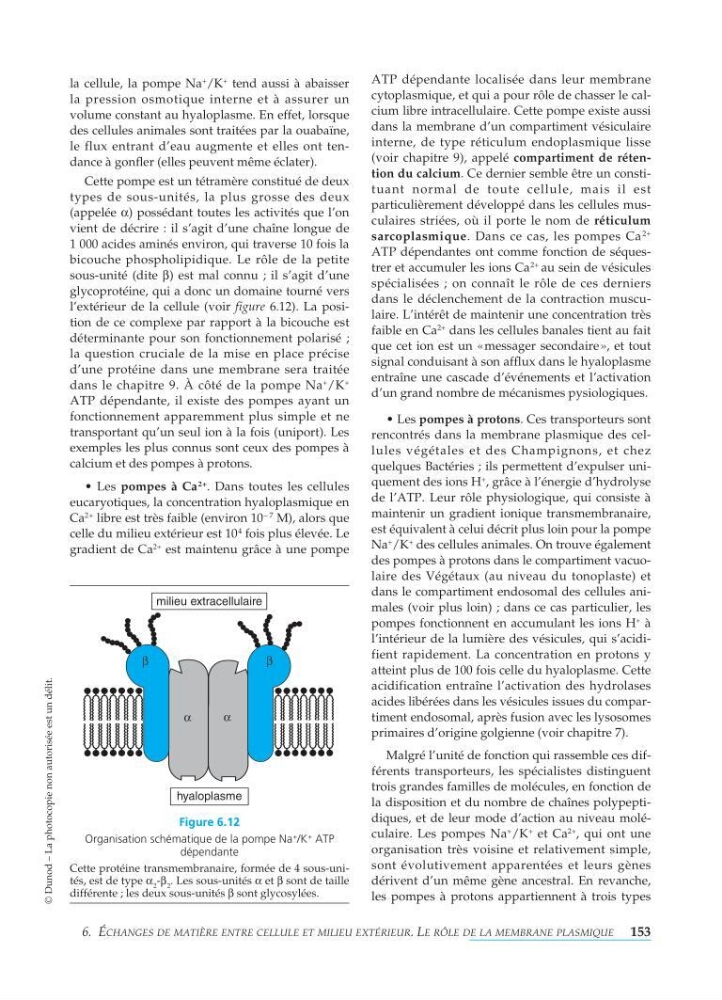
Cette pompe est un tétramère constitué de deux
types de sous-unités, la plus grosse des deux
(appelée α ) possédant toutes les activités que l’on
vient de décrire : il s’agit d’une chaîne longue de
1000 acides aminés environ, qui traverse 10 fois la
bicouche phospholipidique. Le rôle de la petite
sous-unité (dite β ) est mal connu ; il s’agit d’une
glycoprotéine, qui a donc un domaine tourné vers
l’extérieur de la cellule (voir figure 6.12). La position de ce complexe par rapport à la bicouche est
déterminante pour son fonctionnement polarisé ;
la question cruciale de la mise en place précise
d’une protéine dans une membrane sera traitée
dans le chapitre 9. À côté de la pompe Na
+
/K
+
ATP dépendante, il existe des pompes ayant un
fonctionnement apparemment plus simple et ne
transportant qu’un seul ion à la fois (uniport). Les
exemples les plus connus sont ceux des pompes à
calcium et des pompes à protons.
• Les pompes à Ca
2+
. Dans toutes les cellules
eucaryotiques, la concentration hyaloplasmique en
Ca
2+
libre est très faible (environ 10
–7
M), alors que
celle du milieu extérieur est 10
4
fois plus élevée. Le
gradient de Ca
2+
est maintenu grâce à une pompe
ATP dépendante localisée dans leur membrane
cytoplasmique, et qui a pour rôle de chasser le calcium libre intracellulaire. Cette pompe existe aussi
dans la membrane d’un compartiment vésiculaire
interne, de type réticulum endoplasmique lisse
(voir chapitre 9), appelé compartiment de rétention du calcium. Ce dernier semble être un constituant normal de toute cellule, mais il est
particulièrement développé dans les cellules musculaires striées, où il porte le nom de réticulum
sarcoplasmique. Dans ce cas, les pompes Ca
2+
ATP dépendantes ont comme fonction de séquestrer et accumuler les ions Ca
2+
au sein de vésicules
spécialisées ; on connaît le rôle de ces derniers
dans le déclenchement de la contraction musculaire. L’intérêt de maintenir une concentration très
faible en Ca
2+
dans les cellules banales tient au fait
que cet ion est un «messager secondaire», et tout
signal conduisant à son afflux dans le hyaloplasme
entraîne une cascade d’événements et l’activation
d’un grand nombre de mécanismes pysiologiques.
• Les pompes à protons. Ces transporteurs sont
rencontrés dans la membrane plasmique des cellules végétales et des Champignons, et chez
quelques Bactéries ; ils permettent d’expulser uniquement des ions H
+
, grâce à l’énergie d’hydrolyse
de l’ATP. Leur rôle physiologique, qui consiste à
maintenir un gradient ionique transmembranaire,
est équivalent à celui décrit plus loin pour la pompe
Na
+
/K
+
des cellules animales. On trouve également
des pompes à protons dans le compartiment vacuolaire des Végétaux (au niveau du tonoplaste) et
dans le compartiment endosomal des cellules animales (voir plus loin) ; dans ce cas particulier, les
pompes fonctionnent en accumulant les ions H
+
à
l’intérieur de la lumière des vésicules, qui s’acidifient rapidement. La concentration en protons y
atteint plus de 100 fois celle du hyaloplasme. Cette
acidification entraîne l’activation des hydrolases
acides libérées dans les vésicules issues du compartiment endosomal, après fusion avec les lysosomes
primaires d’origine golgienne (voir chapitre 7).
Malgré l’unité de fonction qui rassemble ces différents transporteurs, les spécialistes distinguent
trois grandes familles de molécules, en fonction de
la disposition et du nombre de chaînes polypeptidiques, et de leur mode d’action au niveau moléculaire. Les pompes Na
+
/K
+
et Ca
2+
, qui ont une
organisation très voisine et relativement simple,
sont évolutivement apparentées et leurs gènes
dérivent d’un même gène ancestral. En revanche,
les pompes à protons appartiennent à trois types
α
α
β
β
hyaloplasme
milieu extracellulaire
Figure 6.12
Organisation schématique de la pompe Na
+
/K
+
ATP
dépendante
Cette protéine transmembranaire, formée de 4 sous-unités, est de type α 2 - β 2 . Les sous-unités α et β sont de taille
différente ; les deux sous-unités β sont glycosylées.