

152 B IOLOGIE CELLULAIRE
Na +
Na + Na + Na +
AT PA DP
K +
K +
K +
Pi
P
P
P
hyaloplasme
milieu extracellulaire
1
2
3
4
5
6
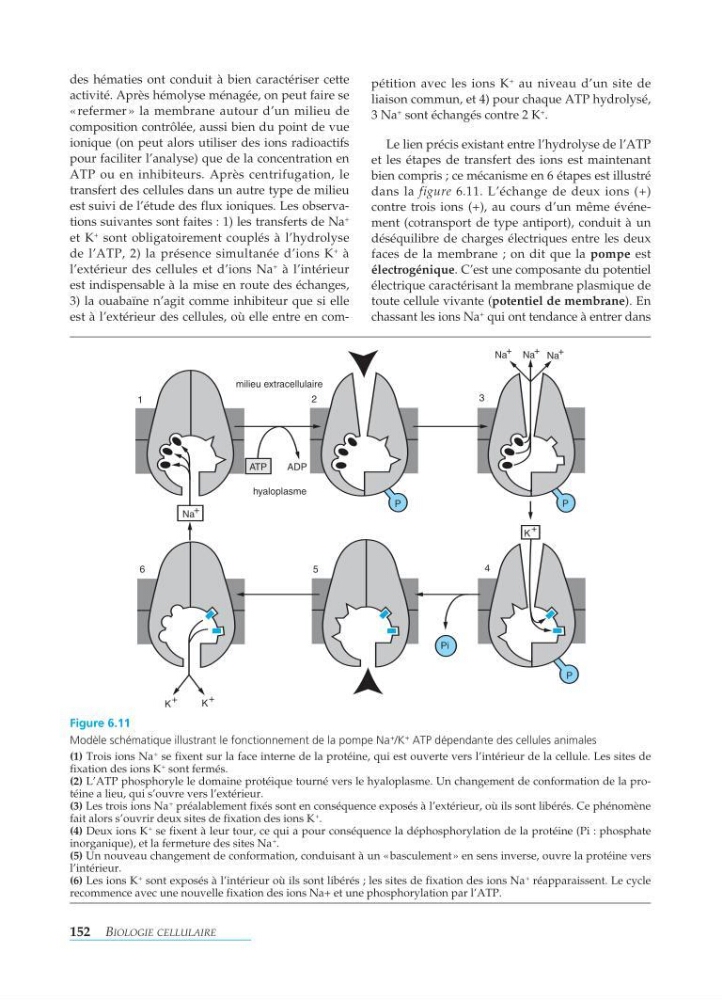
Figure 6.11
Modèle schématique illustrant le fonctionnement de la pompe Na
+
/K
+
ATP dépendante des cellules animales
(1) Trois ions Na
+
se fixent sur la face interne de la protéine, qui est ouverte vers l’intérieur de la cellule. Les sites de
fixation des ions K
+
sont fermés.
(2) L’ATP phosphoryle le domaine protéique tourné vers le hyaloplasme. Un changement de conformation de la protéine a lieu, qui s’ouvre vers l’extérieur.
(3) Les trois ions Na
+
préalablement fixés sont en conséquence exposés à l’extérieur, où ils sont libérés. Ce phénomène
fait alors s’ouvrir deux sites de fixation des ions K
+
.
(4) Deux ions K
+
se fixent à leur tour, ce qui a pour conséquence la déphosphorylation de la protéine (Pi : phosphate
inorganique), et la fermeture des sites Na
+
.
(5) Un nouveau changement de conformation, conduisant à un «basculement» en sens inverse, ouvre la protéine vers
l’intérieur.
(6) Les ions K
+
sont exposés à l’intérieur où ils sont libérés ; les sites de fixation des ions Na
+
réapparaissent. Le cycle
recommence avec une nouvelle fixation des ions Na+ et une phosphorylation par l’ATP.
des hématies ont conduit à bien caractériser cette
activité. Après hémolyse ménagée, on peut faire se
«refermer» la membrane autour d’un milieu de
composition contrôlée, aussi bien du point de vue
ionique (on peut alors utiliser des ions radioactifs
pour faciliter l’analyse) que de la concentration en
ATP ou en inhibiteurs. Après centrifugation, le
transfert des cellules dans un autre type de milieu
est suivi de l’étude des flux ioniques. Les observations suivantes sont faites : 1) les transferts de Na
+
et K
+
sont obligatoirement couplés à l’hydrolyse
de l’ATP, 2) la présence simultanée d’ions K
+
à
l’extérieur des cellules et d’ions Na
+
à l’intérieur
est indispensable à la mise en route des échanges,
3) la ouabaïne n’agit comme inhibiteur que si elle
est à l’extérieur des cellules, où elle entre en compétition avec les ions K
+
au niveau d’un site de
liaison commun, et 4) pour chaque ATP hydrolysé,
3Na
+
sont échangés contre 2K
+
.
Le lien précis existant entre l’hydrolyse de l’ATP
et les étapes de transfert des ions est maintenant
bien compris ; ce mécanisme en 6 étapes est illustré
dans la figure 6.11. L’échange de deux ions (+)
contre trois ions (+), au cours d’un même événement (cotransport de type antiport), conduit à un
déséquilibre de charges électriques entre les deux
faces de la membrane ; on dit que la pompe est
électrogénique. C’est une composante du potentiel
électrique caractérisant la membrane plasmique de
toute cellule vivante ( potentiel de membrane). En
chassant les ions Na
+
qui ont tendance à entrer dans