

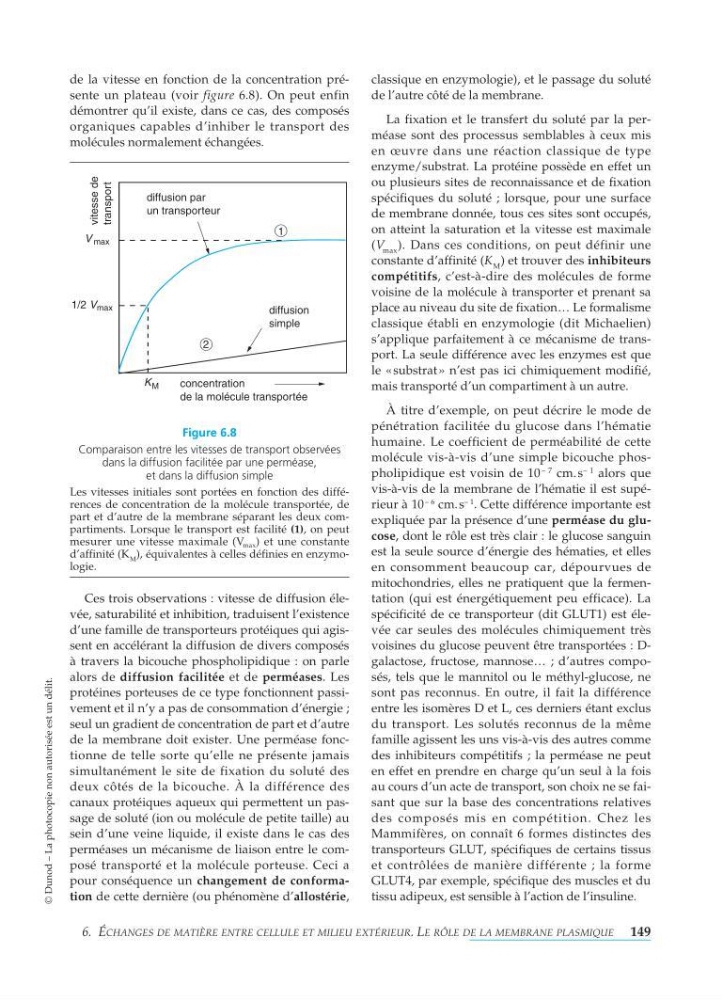
de la vitesse en fonction de la concentration présente un plateau (voir figure 6.8). On peut enfin
démontrer qu’il existe, dans ce cas, des composés
organiques capables d’inhiber le transport des
molécules normalement échangées.
Ces trois observations : vitesse de diffusion élevée, saturabilité et inhibition, traduisent l’existence
d’une famille de transporteurs protéiques qui agissent en accélérant la diffusion de divers composés
à travers la bicouche phospholipidique : on parle
alors de diffusion facilitée et de perméases. Les
protéines porteuses de ce type fonctionnent passivement et il n’y a pas de consommation d’énergie ;
seul un gradient de concentration de part et d’autre
de la membrane doit exister. Une perméase fonctionne de telle sorte qu’elle ne présente jamais
simultanément le site de fixation du soluté des
deux côtés de la bicouche. À la différence des
canaux protéiques aqueux qui permettent un passage de soluté (ion ou molécule de petite taille) au
sein d’une veine liquide, il existe dans le cas des
perméases un mécanisme de liaison entre le composé transporté et la molécule porteuse. Ceci a
pour conséquence un changement de conformation de cette dernière (ou phénomène d’allostérie,
classique en enzymologie), et le passage du soluté
de l’autre côté de la membrane.
La fixation et le transfert du soluté par la perméase sont des processus semblables à ceux mis
en œuvre dans une réaction classique de type
enzyme/substrat. La protéine possède en effet un
ou plusieurs sites de reconnaissance et de fixation
spécifiques du soluté ; lorsque, pour une surface
de membrane donnée, tous ces sites sont occupés,
on atteint la saturation et la vitesse est maximale
( V max ). Dans ces conditions, on peut définir une
constante d’affinité ( K M ) et trouver des inhibiteurs
compétitifs, c’est-à-dire des molécules de forme
voisine de la molécule à transporter et prenant sa
place au niveau du site de fixation… Le formalisme
classique établi en enzymologie (dit Michaelien)
s’applique parfaitement à ce mécanisme de transport. La seule différence avec les enzymes est que
le «substrat » n’est pas ici chimiquement modifié,
mais transporté d’un compartiment à un autre.
À titre d’exemple, on peut décrire le mode de
pénétration facilitée du glucose dans l’hématie
humaine. Le coefficient de perméabilité de cette
molécule vis-à-vis d’une simple bicouche phospholipidique est voisin de 10
–7
cm. s
–1
alors que
vis-à-vis de la membrane de l’hématie il est supérieur à 10
–6
cm. s
–1
. Cette différence importante est
expliquée par la présence d’une perméase du glucose, dont le rôle est très clair : le glucose sanguin
est la seule source d’énergie des hématies, et elles
en consomment beaucoup car, dépourvues de
mitochondries, elles ne pratiquent que la fermentation (qui est énergétiquement peu efficace). La
spécificité de ce transporteur (dit GLUT1) est élevée car seules des molécules chimiquement très
voisines du glucose peuvent être transportées : Dgalactose, fructose, mannose… ; d’autres composés, tels que le mannitol ou le méthyl-glucose, ne
sont pas reconnus. En outre, il fait la différence
entre les isomères D et L, ces derniers étant exclus
du transport. Les solutés reconnus de la même
famille agissent les uns vis-à-vis des autres comme
des inhibiteurs compétitifs ; la perméase ne peut
en effet en prendre en charge qu’un seul à la fois
au cours d’un acte de transport, son choix ne se faisant que sur la base des concentrations relatives
des composés mis en compétition. Chez les
Mammifères, on connaît 6 formes distinctes des
transporteurs GLUT, spécifiques de certains tissus
et contrôlées de manière différente ; la forme
GLUT4, par exemple, spécifique des muscles et du
tissu adipeux, est sensible à l’action de l’insuline.
6. É CHANGES DE MATIÈ RE ENTRE CELLULE ET MILIEU EXTÉRIEUR.L ER Ô LE DE LA MEMBRANE PLASMIQUE 149
© Dunod – La photocopie non autorisée est un délit.
diffusion par
un transporteur
V
1/2 V
K M
max
max
concentration
de la molécule transportée
diffusion
simple
1
2
vitesse de
transport
Figure 6.8
Comparaison entre les vitesses de transport observées
dans la diffusion facilitée par une perméase,
et dans la diffusion simple
Les vitesses initiales sont portées en fonction des différences de concentration de la molécule transportée, de
part et d’autre de la membrane séparant les deux compartiments. Lorsque le transport est facilité (1), on peut
mesurer une vitesse maximale (V max ) et une constante
d’affinité (K M ), équivalentes à celles définies en enzymologie.