

5. O RGANISATION GÉNÉRALE ET FONCTIONS DES MEMBRANES BIOLOGIQUES 127
© Dunod – La photocopie non autorisée est un délit.
les molécules supplémentaires ne sont pas toutes
ionisables de la même façon : l’inositol est neutre,
la sérine est amphotère, la choline ou l’éthanolamine sont chargées positivement et l’acide sialique
des glycolipides est chargé négativement (voir
figures 5.2 et 5.4). Il faut cependant préciser que
toutes ces charges électriques sont neutralisées par
des ions de charge contraire.
3.1.2. A SYMÉTRIE LIÉE AUX PROTÉINES
ET AUX GLUCIDES
L’asymétrie inhérente aux protéines est une
caractéristique fondamentale des membranes biologiques ; toutes leurs propriétés physiologiques
reposent sur elle. L’analyse des rapports structure/fonction au niveau de la membrane plasmique
et des divers organites le prouvera de façon
constante ; nous en aurons un premier aperçu à la
fin de ce chapitre. L’asymétrie due aux protéines
tient au fait que ces molécules ont une organisation
et une orientation bien précises dans la bicouche
lipidique, cette dernière étant fixée une fois pour
toutes lors de leur mise en place en son sein.
L’asymétrie liée aux glucides est un phénomène
«secondaire », en ce sens qu’il n’est qu’un des
aspects de celle liée aux deux autres catégories de
molécules auxquelles ils sont associés (les glycoprotéines et les glycolipides). L’étude de la membrane cytoplasmique, où elle est particulièrement
marquée, nous fournira une illustration claire de
cette polarité de structure.
3.1.3. O RIGINE ET MAINTIEN DE L ’ ASYMÉTRIE
MEMBRANAIRE
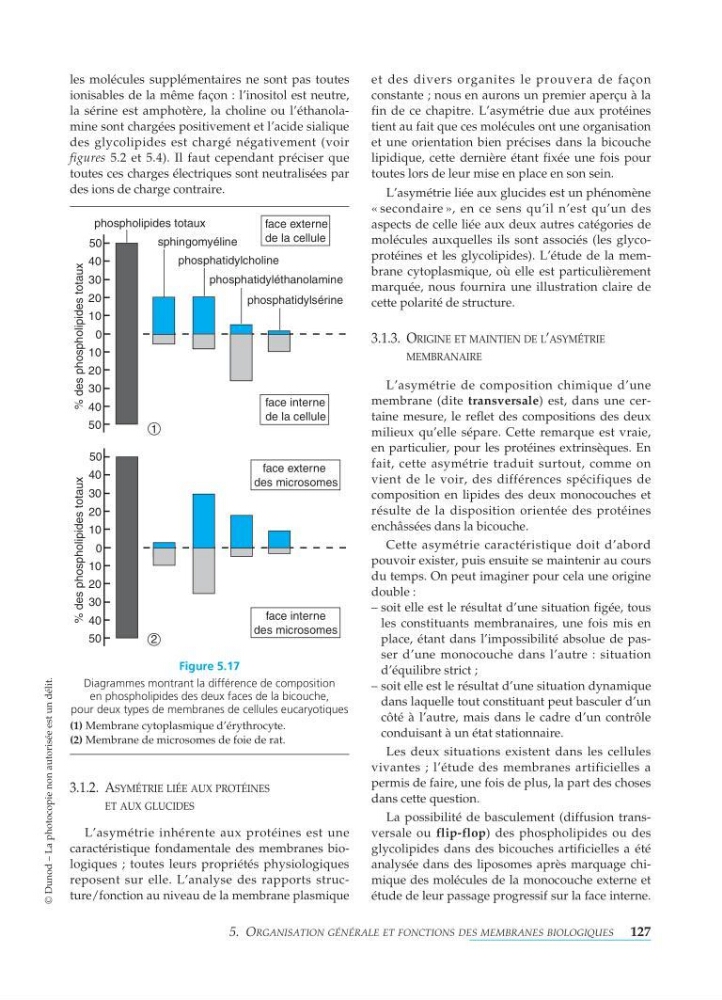
L’asymétrie de composition chimique d’une
membrane (dite transversale) est, dans une certaine mesure, le reflet des compositions des deux
milieux qu’elle sépare. Cette remarque est vraie,
en particulier, pour les protéines extrinsèques. En
fait, cette asymétrie traduit surtout, comme on
vient de le voir, des différences spécifiques de
composition en lipides des deux monocouches et
résulte de la disposition orientée des protéines
enchâssées dans la bicouche.
Cette asymétrie caractéristique doit d’abord
pouvoir exister, puis ensuite se maintenir au cours
du temps. On peut imaginer pour cela une origine
double :
–soit elle est le résultat d’une situation figée, tous
les constituants membranaires, une fois mis en
place, étant dans l’impossibilité absolue de passer d’une monocouche dans l’autre : situation
d’équilibre strict ;
–soit elle est le résultat d’une situation dynamique
dans laquelle tout constituant peut basculer d’un
côté à l’autre, mais dans le cadre d’un contrôle
conduisant à un état stationnaire.
Les deux situations existent dans les cellules
vivantes ; l’étude des membranes artificielles a
permis de faire, une fois de plus, la part des choses
dans cette question.
La possibilité de basculement (diffusion transversale ou flip-flop) des phospholipides ou des
glycolipides dans des bicouches artificielles a été
analysée dans des liposomes après marquage chimique des molécules de la monocouche externe et
étude de leur passage progressif sur la face interne.
50
40
30
20
10
0
10
20
30
40
50
1
2
phospholipides totaux
sphingomyéline
phosphatidylcholine
phosphatidyléthanolamine
phosphatidylsérine
% des phospholipides totaux
face externe
de la cellule
face interne
de la cellule
50
40
30
20
10
0
10
20
30
40
50
% des phospholipides totaux
face externe
des microsomes
face interne
des microsomes
Figure 5.17
Diagrammes montrant la différence de composition
en phospholipides des deux faces de la bicouche,
pour deux types de membranes de cellules eucaryotiques
(1) Membrane cytoplasmique d’érythrocyte.
(2) Membrane de microsomes de foie de rat.