

126 B IOLOGIE CELLULAIRE
2.5.4. C AS DES PROTÉINES LIÉES DE MANIÈRE
COVALENTE ÀD ES ACIDES GRAS OU DES LIPIDES
Pour terminer ce développement, il faut signaler
l’existence, longtemps restée anecdotique, de protéines hydrosolubles (comme les extrinsèques)
retenues à la bicouche par un acide gras ou un
lipide, qui leur sont liés de façon covalente, et les
ancrent littéralement dans celle-ci (elles se comportent donc comme des intrinsèques). Ces molécules de liaison hydrophobes (acide palmitique ou
myristique ; phosphatidyl-inositol) sont le plus
souvent liées en position terminale du polypeptide. De nombreuses protéines ainsi ancrées dans
la bicouche seront décrites lors de l’étude des processus de signalisation cellulaire (voir chapitre 13).
Certaines protéines authentiquement transmembranaires intrinsèques, comme celles vues plus
haut, peuvent en outre renforcer leur accrochage à
la bicouche par un dispositif de ce type.
3. PROPRIÉTÉS GÉNÉRALES
DES MEMBRANES
3.1. Asymétrie membranaire
3.1.1. A SYMÉTRIE LIÉE AUX LIPIDES
Toutes les membranes biologiques possèdent
une bicouche dont la composition en lipides est
différente pour chaque monocouche (ou face) ; on
parle ainsi d’asymétrie membranaire ou de polarité de structure des membranes. Seuls le cholestérol et quelques rares lipides se trouvent en quantités équivalentes dans chacune d’elles, car ils ont la
possibilité de basculer aisément d’une monocouche dans l’autre, en raison de l’importance
relative de leur domaine hydrophobe. Nous décrirons en détail, au cours du chapitre 6, quelques
expériences concernant cette question.
Deux exemples illustrant cette notion, relatifs à
des types différents de membranes de cellules animales, sont présentés à la figure 5.17. On constate
que la répartition des phospholipides majeurs est
fortement asymétrique : la phosphatidyl-sérine et
la phosphatidyl-éthanolamine sont très abondantes sur les faces dites hyaloplasmiques (monocouche interne de la membrane plasmique et
externe des vésicules intracellulaires nommées
microsomes), tandis que la sphingomyéline (et la
phosphatidyl-choline, dans le cas des hématies) est
essentiellement présente sur la face exoplasmique
des membranes. Nous verrons plus loin que la
lumière d’une vésicule interne à la cellule est topologiquement équivalente au milieu extracellulaire.
À cette asymétrie liée aux molécules «supplémentaires» qui confèrent leur identité aux phospholipides, il faut ajouter celle due à une
composition différente en acides gras. Le degré de
saturation différent de ces derniers dans les deux
monocouches entraîne une fluidité variable ; la
signification physiologique de ce fait n’est pas
entièrement comprise. On rappelle enfin que les
glycolipides se rencontrent uniquement dans les
monocouches non hyaloplasmiques. Une conséquence prévisible de cette différence de composition chimique est que les deux faces d’une
membrane n’ont pas la même charge électrique car
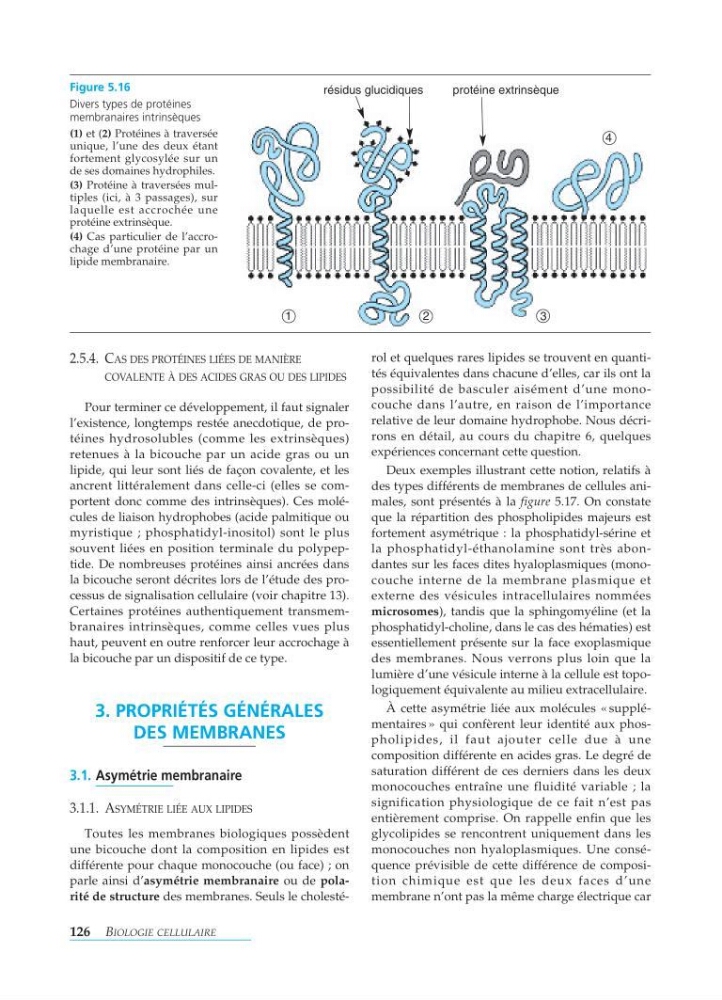
résidus glucidiques
protéine extrinsèque
1
2
3
4
Figure 5.16
Divers types de protéines
membranaires intrinsèques
(1) et ( 2) Protéines à traversée
unique, l’une des deux étant
fortement glycosylée sur un
de ses domaines hydrophiles.
(3) Protéine à traversées multiples (ici, à 3 passages), sur
laquelle est accrochée une
protéine extrinsèque.
(4) Cas particulier de l’accrochage d’une protéine par un
lipide membranaire.