

128 B IOLOGIE CELLULAIRE
Il apparaît que ce phénomène est très rare (moins
d’une fois par mois pour une molécule donnée de
lipide) car les parties polaires relativement importantes des lipides membranaires ne peuvent, pour
des raisons physicochimiques évidentes, franchir le
cœur hydrophobe des bicouches. Seuls les stérols (le
cholestérol, en particulier), le diacylglycérol et la
céramide, qui ont, au contraire, des domaines
polaires très réduits, peuvent basculer aisément et
équilibrer passivement leurs concentrations dans les
deux monocouches (phénomène de symétrisation).
Au sein des cellules vivantes eucaryotiques, les
choses sont bien plus complexes et l’on doit considérer, de ce point de vue, deux types de membranes :
– celles qui sont le siège de la synthèse des lipides
membranaires et de leur incorporation simultanée dans leur propre structure, grâce à des
enzymes incluses dans la bicouche, et qui
s’accroissent donc constamment en surface. Il
s’agit du réticulum endoplasmique (lisse, pour
l’essentiel) ; on parle de membrane biogénique ;
– celles qui ne fabriquent pas de lipides mais qui
dérivent des premières, plus ou moins directement. Il s’agit de toutes les membranes autres que
celles du réticulum : appareil de Golgi, lysosomes, membrane plasmique, organites semiautonomes… ; on parle alors de membranes non
biogéniques.
Chez les Procaryotes, la membrane cytoplasmique (la seule le plus souvent représentée) appartient évidemment à la première catégorie.
Comme on le verra dans le chapitre 9, les membranes biologiques doivent, pour se maintenir à
l’état de bicouche, posséder impérativement des
mécanismes actifs assurant un basculement très
rapide (en quelques minutes) de certains des phospholipides néosynthétisés sur la seule face hyaloplasmique. On connaît en fait au moins une
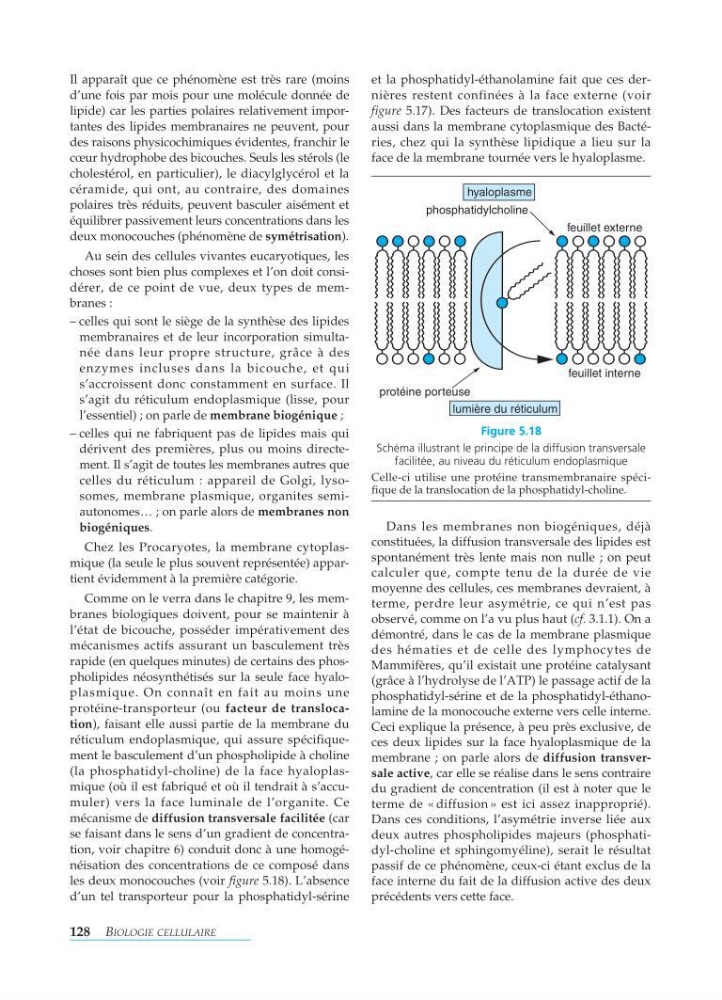
protéine-transporteur (ou facteur de translocation), faisant elle aussi partie de la membrane du
réticulum endoplasmique, qui assure spécifiquement le basculement d’un phospholipide à choline
(la phosphatidyl-choline) de la face hyaloplasmique (où il est fabriqué et où il tendrait à s’accumuler) vers la face luminale de l’organite. Ce
mécanisme de diffusion transversalefacilitée (car
se faisant dans le sens d’un gradient de concentration, voir chapitre 6) conduit donc à une homogénéisation des concentrations de ce composé dans
les deux monocouches (voir figure 5.18). L’absence
d’un tel transporteur pour la phosphatidyl-sérine
et la phosphatidyl-éthanolamine fait que ces dernières restent confinées à la face externe (voir
figure 5.17). Des facteurs de translocation existent
aussi dans la membrane cytoplasmique des Bactéries, chez qui la synthèse lipidique a lieu sur la
face de la membrane tournée vers le hyaloplasme.
Dans les membranes non biogéniques, déjà
constituées, la diffusion transversale des lipides est
spontanément très lente mais non nulle ; on peut
calculer que, compte tenu de la durée de vie
moyenne des cellules, ces membranes devraient, à
terme, perdre leur asymétrie, ce qui n’est pas
observé, comme on l’a vu plus haut ( cf. 3.1.1). On a
démontré, dans le cas de la membrane plasmique
des hématies et de celle des lymphocytes de
Mammifères, qu’il existait une protéine catalysant
(grâce à l’hydrolyse de l’ATP) le passage actif de la
phosphatidyl-sérine et de la phosphatidyl-éthanolamine de la monocouche externe vers celle interne.
Ceci explique la présence, à peu près exclusive, de
ces deux lipides sur la face hyaloplasmique de la
membrane ; on parle alors de diffusion transversale active, car elle se réalise dans le sens contraire
du gradient de concentration (il est à noter que le
terme de «diffusion » est ici assez inapproprié).
Dans ces conditions, l’asymétrie inverse liée aux
deux autres phospholipides majeurs (phosphatidyl-choline et sphingomyéline), serait le résultat
passif de ce phénomène, ceux-ci étant exclus de la
face interne du fait de la diffusion active des deux
précédents vers cette face.
phosphatidylcholine
protéine porteuse
feuillet externe
feuillet interne
hyaloplasme
lumière du réticulum
Figure 5.18
Schéma illustrant le principe de la diffusion transversale
facilitée, au niveau du réticulum endoplasmique
Celle-ci utilise une protéine transmembranaire spécifique de la translocation de la phosphatidyl-choline.