

118 B IOLOGIE CELLULAIRE
Tous ces assemblages moléculaires sont analysables par la microscopie électronique : coloration
négative, cryofracture, ou par les méthodes de diffraction des rayons X. L’utilisation de mélanges de
plus en plus complexes de lipides, et dont la composition se rapproche de celles des membranes
biologiques, a permis de mieux comprendre
l’organisation de ces dernières. La possiblilité de
construire des protéoliposomes, en ajoutant des
protéines hydrophobes à ces mélanges, permet
d’étudier la façon dont elles s’insèrent éventuellement au sein des bicouches artificielles et les propriétés nouvelles qu’elles leur confèrent.
Outre leur intérêt fondamental lié à l’existence
d’une cavité aqueuse interne, ce qui autorise de
nombreuses études sur la perméabilité des membranes phospholipidiques, les liposomes constituent potentiellement des structures ayant de
nombreuses applications de type thérapeutique et
cosmétologique (Voir : Perspective biomédicale).
2.2. Données initiales de la microscopie
électronique : la structure trilaminaire
Avant même l’avènement de la microscopie
électronique, toutes les analyses biochimiques ou
physiologiques faites sur les membranes convergeaient vers un modèle basé sur l’existence d’une
bicouche phospholipidique de part et d’autre de
laquelle seraient associées, d’une manière ou
d’une autre, des protéines diverses ; c’est le sandwich lipido-protéique de DANIELLI et DAWSON
(1935). Lorsque le pouvoir séparateur de cette nouvelle technique d’observation a été suffisant (de
l’ordre du nm) et que les techniques de préparation des échantillons ont été fiables, la structure
fine des membranes a pu être enfin découverte.
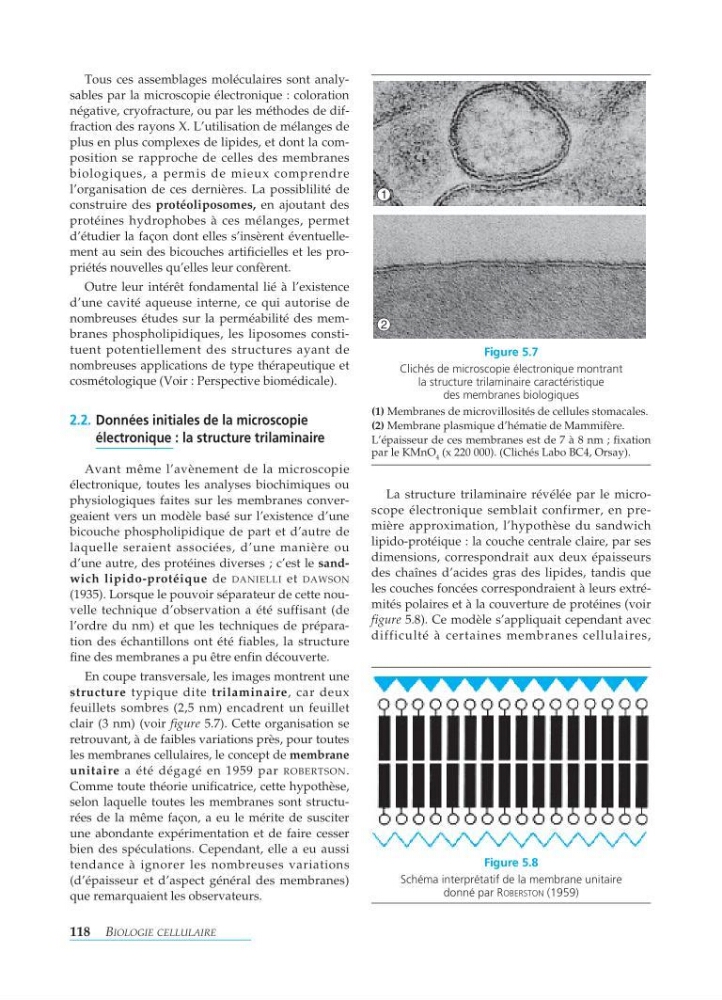
En coupe transversale, les images montrent une
structure typique dite trilaminaire, car deux
feuillets sombres (2,5 nm) encadrent un feuillet
clair (3 nm) (voir figure 5.7). Cette organisation se
retrouvant, à de faibles variations près, pour toutes
les membranes cellulaires, le concept de membrane
unitaire a été dégagé en 1959 par ROBERTSON.
Comme toute théorie unificatrice, cette hypothèse,
selon laquelle toutes les membranes sont structurées de la même façon, a eu le mérite de susciter
une abondante expérimentation et de faire cesser
bien des spéculations. Cependant, elle a eu aussi
tendance à ignorer les nombreuses variations
(d’épaisseur et d’aspect général des membranes)
que remarquaient les observateurs.
La structure trilaminaire révélée par le microscope électronique semblait confirmer, en première approximation, l’hypothèse du sandwich
lipido-protéique : la couche centrale claire, par ses
dimensions, correspondrait aux deux épaisseurs
des chaînes d’acides gras des lipides, tandis que
les couches foncées correspondraient à leurs extrémités polaires et à la couverture de protéines (voir
figure 5.8). Ce modèle s’appliquait cependant avec
difficulté à certaines membranes cellulaires,
Figure 5.7
Clichés de microscopie électronique montrant
la structure trilaminaire caractéristique
des membranes biologiques
(1) Membranes de microvillosités de cellules stomacales.
(2) Membrane plasmique d’hématie de Mammifère.
L’épaisseur de ces membranes est de 7 à 8 nm ; fixation
par le KMnO 4 (x 220 000). (Clichés Labo BC4, Orsay).
1
2
Figure 5.8
Schéma interprétatif de la membrane unitaire
donné par R OBERSTON (1959)