

© Dunod – Toute reproduction non autorisée est un délit.
27
3.2 • Matrice de substitution
souhaite comparer avec non pas des identités mais avec des similitudes. Ce concept
amène la notion de matrice de substitution.
Le besoin de comparer des séquences différentes nécessite que l’on puisse quantifier la ressemblance entre des peptides ne présentant pas d’identités. En effet, les
trois peptides suivants ne présentent pas d’identité entre eux. Pourtant n’importe
quel biochimiste ou phylogénéticien est capable de dire que les peptides 1 et 2 se
ressemblent plus entre eux que les peptides 1 et 3. En effet, pour chaque position des
peptides 1 et 2, les propriétés physico-chimiques (voir figure 1.3, diagramme de
Venn des acides aminés) correspondent mieux pour les deux premiers peptides que
pour les peptides 1 et 3.
Comparaison de peptides différents
Peptide 1
A E I G L M A E I G L S E K I L
Peptide 2
L D V A A I G D L A I T Q R L M
Peptide 3
W R G I Y S H H D E T W D C P C
La quantification de la ressemblance entre les peptides implique que l’on soit
capable de donner un score au remplacement d’un acide aminé par un autre. Cette
quantification est à l’origine des tables de substitution (20 × 20) qui affecte une
valeur à chaque paire (i j
, ). La première table ou matrice de substitution est due au
travail pionnier de Margaret Dayhoff qui est basé sur le fait que les mutations accumulées au cours de l’évolution n’ont pas altéré la fonction des protéines. On parle
alors de mutations ponctuelles acceptées (ou PAM). Le postulat est que les protéines évoluent via des successions de mutations ponctuelles indépendantes les unes
des autres et acceptées dans la population. Pour faire son étude, M. Dayhoff a aligné
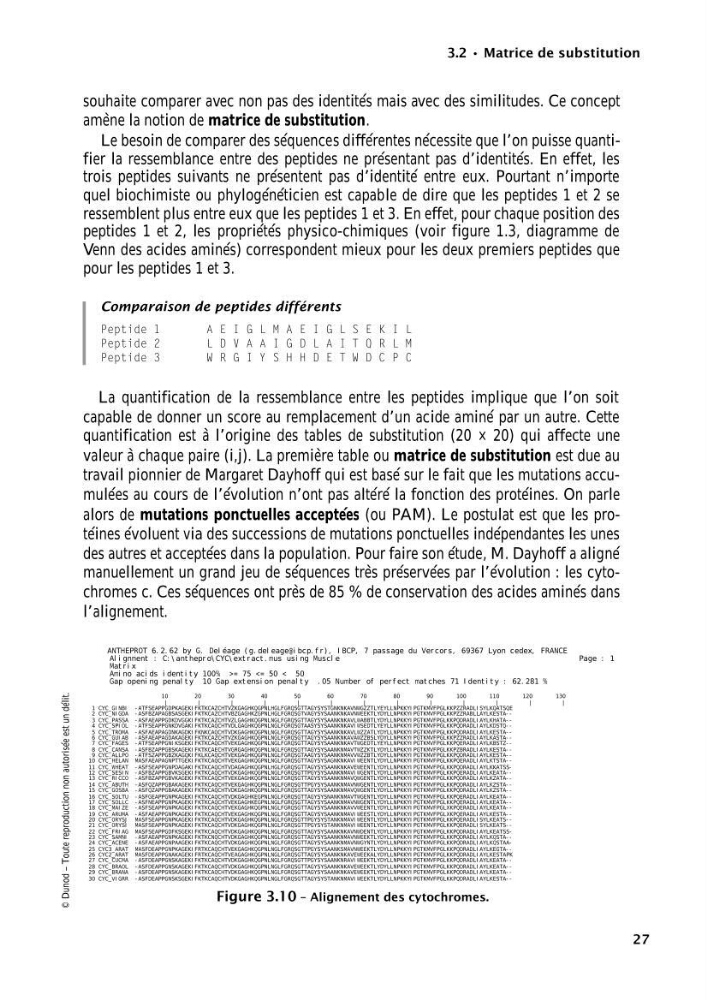
manuellement un grand jeu de séquences très préservées par l’évolution : les cytochromes c. Ces séquences ont près de 85 % de conservation des acides aminés dans
l’alignement.
ANTHEPROT 6.2.62 by G. Deléage (g.deleage@ibcp.fr), IBCP, 7 passage du Vercors, 69367 Lyon cedex, FRANCE
Alignment :
using Muscle
Page : 1
C:\anthepro\CYC\extract.mus
Matrix
Amino acids identity
< 50
100% >= 75 <= 50
Gap opening penalty 10 Gap extension penalty .05 Number of perfect matches 71 Identity : 62.281 %
10
20
30
40
50
60
70
80
90
100
110
120
130
|
|
|
|
|
|
|
|
|
|
|
|
|
1 CYC_GINBI -
S
P
N G Z
QE
A F
T E P
AP GD K E
KT AZ
K
Q
H
TAG
TG N
AG KIF KC CHTVZ GAGHK GPNL GLFGRQSGT
YSYS NK KAV W Z T E
K
K Z
D IS
S
LY YLLNP KYIPGTKMVFPGL KP ZRA L YLK T
QA
2 CYC_NIGDA -
B
S
N E K
-A F
S Z A
AP GB A E
KT AZ
Z
Z
H
VAG
AA N
SG KIF KC CHTVB GAGHK GPNL GLFGRQSGT
YSYS NK KAV W E T D
K
K Z
B LA
A
LY YLLNP KYIPGTKMVFPGL KP ZRA L YLK T
ES
3 CYC_PASSA -
A
K
L A B
-A F
S E P
AP GD D G
KT AZ
L
Q
N
TAG
AA N
VG KIF KC CHTVZ GAGHK GPNL GLFGRQSGT
YSYS NK KAV W B T D
K
K Q
D IA
A
LY YLLNP KYIPGTKMVFPGL KP DRA L YLK T
HA
4 CYC_SPIOL -
S
K
I S D
-A F
T E P
AP GN D A
KT AQ
L
Q
N
AAS
AA N
VG KIF KC CHTVD GAGHK GPNL GLFGRQSGT
YSYS NK KAV W E T E
K
K Q
D IA
Q
LY YLLNP KYIPGTKMVFPGL KP DRA L YLK T
DS
5 CYC_TROMA -
A
N
L Z A
-A F
S E A
AP GD K D
KN AQ
K
Q
N
TAG
AA N
AG KIF KC CHTVD GAGHK GPNL GLFGRQSGT
YSYS NK KAV W Z T D
K
K Q
D IA
A
LY YLLNP KYIPGTKMVFPGL KP DRA L YLK T
ES
6 CYC_GUIAB -
A
A
A Z B
-A F
S E A
AP GD K E
KT AZ
K
Q
N
TAG
AA N
AG KIF KC CHTVZ GAGHK GPNL GLFGRQSGT
YSYS NK KAV W Z S D
K
K Z
D IA
A
LY YLLNP KYIPGTKMVFPGL KP ZRA L YLK T
AS
7 CYC_FAGES -
S
I
T G D
-A F
T E P
AP GN K E
KT AQ
K
Q
N
TAG
AA N
SG KIF KC CHTVE GAGHK GPNL GLFGRQSGT
YSYS NK KAV W E T E
K
K Q
D IA
Z
LY YLLNP KYIPGTKMVFPGL KP ERA L YLK T
BS
8 CYC_CANSA -
B
S
T Z K
-A F
S Z P
AP GB K E
KT AE
R
Q
N
TAG
AA N
AG KIF KC CHTVG GAGHK GPNL GLFGRQSGT
YSYS NK MAV W Z T D
K
K Z
D IA
A
LY YLLNP KYIPGTKMVFPGL KP BRA L YLK T
ES
9 CYC_ALLPO -
S
Z
V Z B
-A F
T Z P
AP GB K Q
KL AQ
K
Q
N
AAG
AA N
AG KIF KC CHTVE GAGHK GPNL GLFGRQSGT
YSYS NK MAV W Z T D
K
K Q
D IA
A
LY YLLNP KYIPGTKMVFPGL KP DRA L YLK T
ES
10 CYC_HELAN M
A
P
I E N
-A F
S E A
AP GN T E
KT AQ
K
Q
N
TAG
AG N
TG KIF KC CHTVE GAGHK GPNL GLFGRQSGT
YSYS NK KAV W E T D
K
K Q
D IA
A
LY YLLNP KYIPGTKMVFPGL KP ERA L YLK T
TS
11 CYC_WHEAT -
S
P
E E N
SA F
S E P
AP GN D A
KT AQ
A
Q
H
TAG
AA N
AG KIF KC CHTVD GAGHK GPNL GLFGRQSGT
YSYS NK KAV W E T D
K
K Q
D IA
S
LY YLLNP KYIPGTKMVFPGL KP DRA L YLK T
KA
12 CYC_SESIN -
B
V
I G N
-A F
S Z P
AP GB K E
KT AQ
K
Q
N
TPG
AA N
SG KIF KC CHTVD GAGHK GPNL GLFGRQSGT
YSYS NK MAV W E T D
K
K Q
D IA
A
LY YLLNP KYIPGTKMVFPGL KP ERA L YLK T
EA
13 CYC_RICCO -
B
V
Q G N
-A F
S Z P
AP GB K E
KT AQ
K
Q
N
TAG
AA N
AG KIF KC CHTVE GAGHK GPNL GLFGRQSGT
YSYS NK MAV W E T D
K
K Q
D IA
A
LY YLLNP KYIPGTKMVFPGL KP DRA L YLK T
ZA
14 CYC_ABUTH -
Q
A
N G N
-A F
S Z P
AP GB K E
KT AQ
K
Q
N
TPG
AA N
AG KIF KC CHTVE GAGHK GPNL GLFGRQSGT
YSYS NK MAV W E T D
K
K Q
D IA
A
LY YLLNP KYIPGTKMVFPGL KP DRA L YLK T
ZS
15 CYC_GOSBA -
Q
A
Q G N
-A F
S Z P
AP GB K E
KT AQ
K
Q
N
TAG
AA N
AG KIF KC CHTVD GAGHK GPNL GLFGRQSGT
YSYS NK MAV W E T D
K
K Q
D IA
A
LY YLLNP KYIPGTKMVFPGL KP DRA L YLK T
ZS
16 CYC_SOLTU -
G
P
T G N
-A F
S E P
AP GN K E
KT AQ
K
E
N
TAG
NA N
AG KIF KC CHTVD GAGHK GPNL GLFGRQSGT
YSYS NK MAV W E T D
K
K Q
D IA
A
LY YLLNP KYIPGTKMVFPGL KP ERA L YLK T
EA
17 CYC_SOLLC -
N
P
N G N
-A F
S E P
AP GN K E
KT AQ
K
E
N
TAG
AA N
AG KIF KC CHTVE GAGHK GPNL GLFGRQSGT
YSYS NK MAV W E T D
K
K Q
D IA
A
LY YLLNP KYIPGTKMVFPGL KP ERA L YLK T
EA
18 CYC_MAIZE -
S
P
V E N
-A F
S E P
AP GN K E
KT AQ
K
Q
N
TAG
AA N
AG KIF KC CHTVE GAGHK GPNL GLFGRQSGT
YSYS NK KAV W E T D
X
X Q
D IA
A
LY YLLNP KYIPGTKMVFPGL KP ERA L YLK T
EA
19 CYC_ARUMA -
A
P
I E S
-A F
S E P
AP GN K E
KT AQ
K
Q
N
TAG
AA N
AG KIF KC CHTVE GAGHK GPNL GLFGRQSGT
YSYS NK MAV W E T D
X
X Q
D IA
A
LY YLLNP KYIPGTKMVFPGL KP ERA L YLK T
ES
20 CYC_ORYSJ M
S
P
I E N
-A F
S E P
AP GN K E
KT AQ
K
Q
N
TPG
TA N
AG KIF KC CHTVD GAGHK GPNL GLFGRQSGT
YSYS NK MAV W E T D
K
K Q
D IS
S
LY YLLNP KYIPGTKMVFPGL KP ERA L YLK T
EA
21 CYC_ORYSI M
S
P
I E N
-A F
S E P
AP GN K E
KT AQ
K
Q
N
TPG
TA N
AG KIF KC CHTVD GAGHK GPNL GLFGRQSGT
YSYS NK MAV W E T D
K
K Q
D IS
S
LY YLLNP KYIPGTKMVFPGL KP ERA L YLK T
EA
22 CYC_FRIAG M
S
F
N D N
SA F
S E P
AP GD K E
KT AQ
K
Q
N
TAG
AA N
SG KIF KC CHTVD GAGHK GPNL GLFGRQSGT
YSYS NK KAV W E T D
K
K Q
D IA
S
LY YLLNP KYIPGTKMVFPGL KP DRA L YLK T
EA
23 CYC_SAMNI -
A
P
N E K
-A F
S E P
AP GN K E
KT NQ
K
Q
N
TAG
AA N
AG KIF KC CHTVD GAGHK GPNL GLFGRQSGT
YSYS NK MAV W E T D
K
K Q
D IA
A
LY YLLNP KYIPGTKMVFPGL KP DRA L YLK T
QS
24 CYC_ACENE -
A
P
N G N
AA F
S E P
AP GN A E
KT AQ
K
Q
N
TAG
AA N
AG KIF KC CHTVD GAGHK GPNL GLFGRQSGT
YSYS NK MAV W Y T D
K
K Q
D IA
A
LY YLLNP KYIPGTKMVFPGL KP DRA L YLK T
QS
25 CYC3_ARAT M
D
P
N E K
-A F
S E P
AP GN K E
RT AQ
K
Q
N
TPG
AA S
AG KIF KC CHTVE GAGHK GPNL GLFGRQSGT
YSYS NK MAV W E T D
K
K Q
D IA
A
LY YLLNP KYIPGTKMVFPGL KP DRA L YLK T
EG
26 CYC2_ARAT M
D
A
E E K
PK
A F
S E P
AP GN K E
RT AQ
A
Q
N
TAG
AA N
AG KIF KC CHTVE GAGHK GPNL GLFGRQSGT
YSYS NK KAV W E A D
K
K Q
D IA
A
LY YLLNP KYIPGTKMVFPGL KP DRA L YLK T
ES
27 CYC_CUCMA -
D
S
I E K
-A F
S E P
AP GN K E
KT AQ
K
Q
N
TPG
AA N
AG KIF KC CHTVD GAGHK GPNL GLFGRQSGT
YSYS NK RAV W E T D
K
K Q
D IA
A
LY YLLNP KYIPGTKMVFPGL KP DRA L YLK T
EA
28 CYC_BRAOL -
D
S
E E K
-A F
S E P
AP GN K E
KT AQ
K
Q
N
TAG
AA N
AG KIF KC CHTVD GAGHK GPNL GLFGRQSGT
YSYS NK KAV W E T D
K
K Q
D IA
A
LY YLLNP KYIPGTKMVFPGL KP DRA L YLK T
EA
29 CYC_BRANA -
D
S
E E K
-A F
S E P
AP GN K E
KT AQ
K
Q
N
TAG
AA N
AG KIF KC CHTVD GAGHK GPNL GLFGRQSGT
YSYS NK KAV W E T D
K
K Q
D IA
A
LY YLLNP KYIPGTKMVFPGL KP DRA L YLK T
EA
30 CYC_VIGRR -
D
S
I E K
-A F
S E P
AP GN K E
KT AQ
K
Q
N
TAG
TA N
SG KIF KC CHTVD GAGHK GPNL GLFGRQSGT
YSYS NK MAV W E T D
K
K Q
D IA
A
LY YLLNP KYIPGTKMVFPGL KP DRA L YLK T
ES
Figure 3.10 – Alignement des cytochromes.