

© Dunod – Toute reproduction non autorisée est un délit.
155
11.8 • Modélisation de structures 3D
• Choix du support
Dans les cas simples, cette relation d’homologie peut être inférée en comparant la
séquence de la protéine d’intérêt avec l’ensemble des séquences de protéines dont la
structure 3D est connue. La relation d’homologie est alors prédite sans grand risque
si une séquence de longueur comparable présente plus de 30 % d’identités réparties
sur plus de 70 % de la longueur de la séquence la plus longue. En revanche, des
protéines peuvent être homologues même si les séquences résiduelles ont divergé au
point que l’alignement devient problématique et que l’identité des séquences est
faible. Ainsi, la détection d’empreinte par une stratégie de BLAST direct sur la PDB
ne permet d’obtenir un support valide que pour 20 % des protéines alors que pour
70 % des protéines, il existe une protéine empreinte difficile à détecter. On parle
alors d’homologues distants.
• Détection de support en cas d’homologie distante
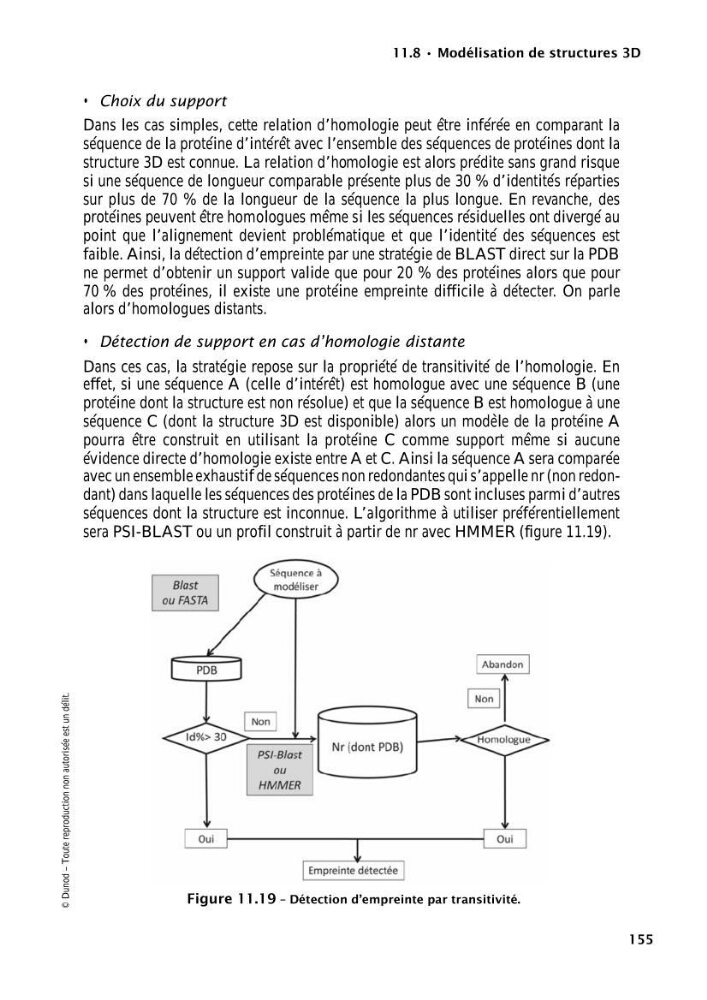
Dans ces cas, la stratégie repose sur la propriété de transitivité de l’homologie. En
effet, si une séquence A (celle d’intérêt) est homologue avec une séquence B (une
protéine dont la structure est non résolue) et que la séquence B est homologue à une
séquence C (dont la structure 3D est disponible) alors un modèle de la protéine A
pourra être construit en utilisant la protéine C comme support même si aucune
évidence directe d’homologie existe entre A et C. Ainsi la séquence A sera comparée
avec un ensemble exhaustif de séquences non redondantes qui s’appelle nr (non redondant) dans laquelle les séquences des protéines de la PDB sont incluses parmi d’autres
séquences dont la structure est inconnue. L’algorithme à utiliser préférentiellement
sera PSI-BLAST ou un profil construit à partir de nr avec HMMER (figure 11.19).
Figure 11.19 – Détection d’empreinte par transitivité.