

Moäésaon en éîang
263
2°) Comportement du modèle :
+
Analyse
qualitative
:
Cette
analyse
a
pour
objet
la
recherche
des
points
d‘équilibre
du
système et la détermination de leur stabilité.
Nous
ne
l‘exposons
pas
ici
mais
elle
permet
de
se
faire
une
idée
du
comportement du
modèle avant les premieres simulations.
+
Premières simulations — introduction de seuils
:
Tel
quel,
le
modèle
est
très
instable.
Dès
que
la
valeur
des
paramètres
de
croissance
exponentielle
sont
importantes
(ici
de
l‘ordre de
1/j.) ou que
l‘on
autorise
le
zooplancton
à
brouter
le
lisier
(c
0), ou encore que les
conditions
initiales
s‘éloignent de celles de l‘équilibre défini par l‘analyse
qualitative,
un
tel
système devient très cahotique (Lebreton et Millier 1982)
et
la
stabilité
numérique est délicate à obtenir. Dans notre cas ce comporte—
ment
est
provoqué puis entretenu par une trop grande différence massale (qui
ne
fait
que
s‘amplifier) entre le phyto et le zooplancton ; ces compartiments
accusent alors
des
chutes brutales de biomasses allant jusqu‘à 10"6 voire 10“8
mg C./ll
ce
qui
perd
tout
sens
biologique
(pour le zooplancton 10—8 mg C/l
représente environ 0,2 individus par m3
!).
D‘où
l‘idée
développée par Scavia
et
al.
(1976), Jorgensen (1976), Morisson et al, 1981 et d'autres auteurs de
fixer
un
seuil
minimum
en
proies
qui
déclenche
la
prise
alimentaire.
Ces
seuils visant à empêcher l'effondrement d'un compartiment lors d‘une surcharge
du
niveau
trophique supérieur ont un sens biologique bien connu : lorsque les
proies
se
font
rares,
le
prédateur n‘est plus stimulé par la chasse et cesse
pratiquement de s‘alimenter.
D'un
point de vue déterministe, il semble que ce—
la
se
produise
lorsque
la
dépense
énergétique liée à l'action de Chasse de—
vient
supérieure au gain expecté de cette dernière,
Holt
1985.
Là encore,
les
valeurs sont difficiles à déterminer
:
Pour
le
phytoplancton Jorgensen (1976) utilise 0,5 mg MS/l (matière sèche)
pour
les
lacs
suédois
soit
environ
0,2
mg
C/l,
valeur
assez
élevée.
Steele
(1974) utilise 0,075 mg/l en mer. Nous utiliserons 81 = 0,05 à 0,1 mg C/l comme
seuil
déclenchant
la
prise
alimentaire
du
zooplancton et 82 =
0,001
mg
C/l
(soit environ 20 ind./l) comme seuil déclenchant la prise alimentaire des ale—
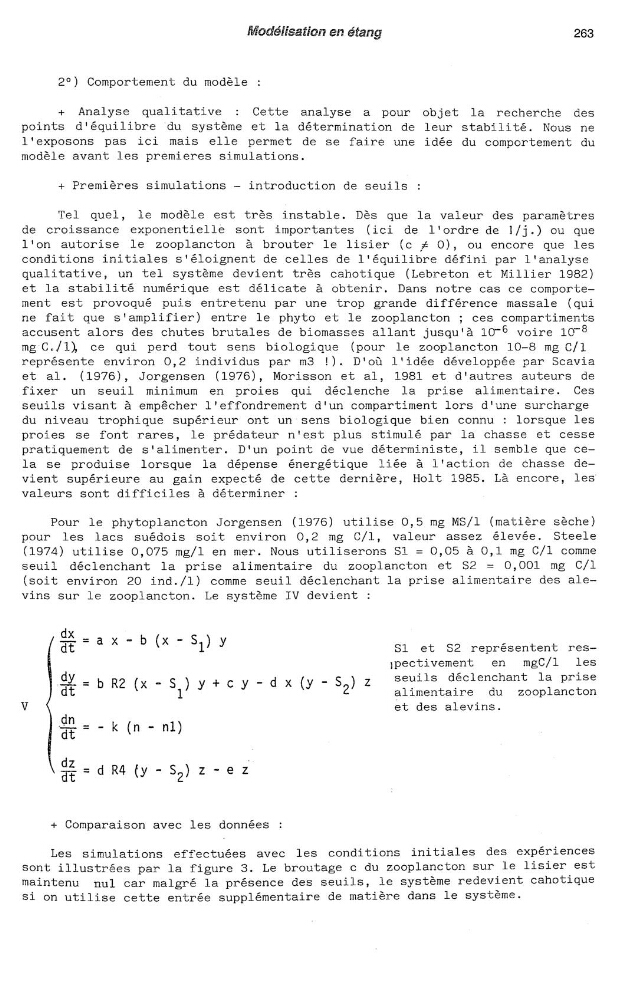
vins sur le zooplancton. Le système IV devient :
dx
_
EÏ
_
8
X
b (X
51) y
81
et
82
représentent res—
;pectivement
en
mgC/l
les
dy
seuils
déclenchant
la
prise
-—=bR2
-S
+c
-dx
—5
z
dt
(X
1)
y
y
(y
2)
alimentaire
du
zooplancton
V
et des
alevins.
dn
=——
=
-
k
n
—
nl
dt
(
)
dz
'
=
-
—
e
2
+
Comparaison avec les données :
Les
simulations
effectuées
avec
les
conditions
initiales
des
expériences
sont
illustrées par la figure 3. Le broutage c du zooplancton sur le lisier est
maintenu
nul
car
malgré la présence des seuils, le système redevient cahot1que
si
on
utilise cette entrée supplémentaire de matière dans le système.