

f0désæäi@n en étang
261
+
système d‘équations :
.
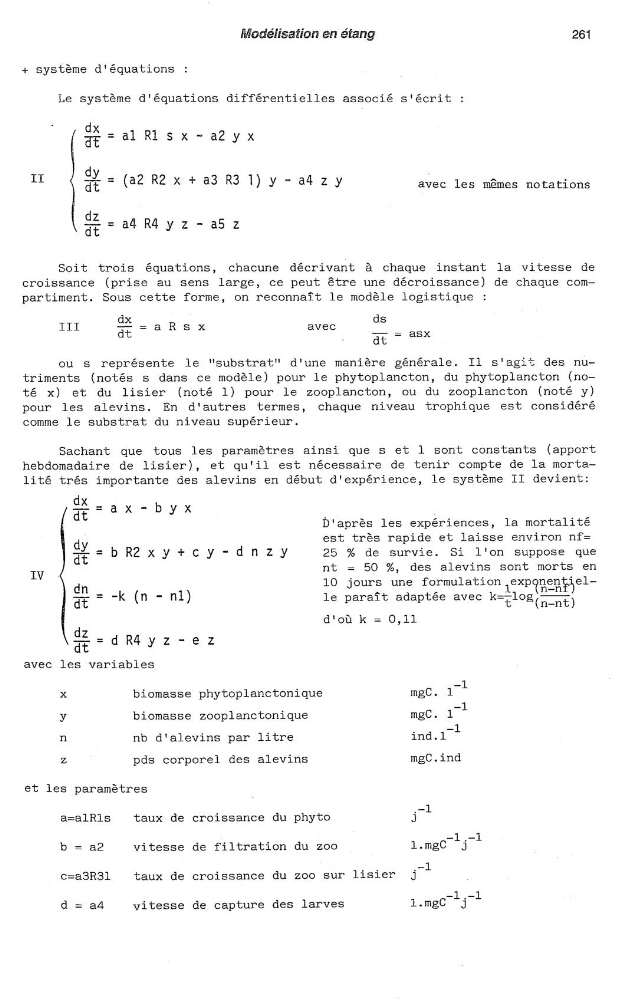
Le système d‘équations différentielles associé s‘écrit :
‘
dx
æ—ä1RISX
a2yx
II
ÊY-=(a2R2x+a3R31)
—4
‘
-
dt
Y
a
2 Y
avec
les memes notations
dz
———=a4R
—
dt
4yz
a52
Soit
trois
équations,
chacune
décrivant à chaque instant la vitesse de
croissance
(prise au sens large, ce peut être une décroissance) de chaque com—
partiment. Sous cette forme, on reconnaît le modèle logistique :
III
%% = a R 8 x
avec
ÎÎ
_
asx
'
dt _
ou
s
représente
le
"substrat"
d‘une
manière
générale.
Il
s'agit des nu—
triments
(notés 5 dans ce modèle) pour le phytoplancton, du phytoplancton (no—
té
x)
et
du
lisier
(noté 1) pour le zooplancton,
ou
du
zooplancton (noté y)
pour
les
alevins.
En
d‘autres
termes,
chaque niveau trophique
est
considéré
comme
le substrat du niveau supérieur.
Sachant
que
tous
les
paramètres ainsi que s et 1 sont constants (apport
hebdomadaire
de
lisier), et qu‘il est nécessaire de tenir compte de la morta—
lité très importante des alevins en début d'expérience, le système Il devient:
d
d—ÏË=
ax
=
byx
_
D‘après les expériences, la mortalité
d
est très rapide et laisse environ nf=
—l-= b R2 X y + C y - d n 2 y
25
%
de
survie.
Si
l‘on
suppose
que
dt
.
nt
:
50
%,
des
alev1ns
sont
morts
en
IV
.
.
.
.
10
Jours
une
formulation
exp
ËÊ
=
-k (n - nl)
l
“t ada t'e avec
dt
e
para1
p
e
_t
g(n—nt)
d‘où k = 0,11
dz
—=dR
—ez
dt
4yz
avec
les variables
.
.
-1
X
biomasse phytoplancton1que
mgC. 1
—1
y
biomasse
zooplanctonique
mgC. l
,
—1
n
nb
d‘alevins par litre
ind.l
Z
pds corporel des alevins
mgC.ind
et les paramètres
.
_—1
a=alRls
taux de
crOissance
du phyto
J
_
_
-1.—1
b : a2
vitesse
de
filtration du zoo
l.mgC
J
..
.—1
’
c=a3R31
taux de croissance du zoo sur 11s1er
J
—1.—l
d = 84
vitesse de capture des larves
l.mgC
J