

330
Complexes macrocycliques. Cryptates
Protonation externe : espèces mono- et di-protonées, [ 1.1.1 ,H+] et [ 1.1. I ,2Hf1
L'addition, à 2700K, d'acide trifluoroacétique à une solution de diamine
[l.l.l] dans l'acétone-d, donne un composé dont le spectre RMN est très
semblable à celui du [I.I.I]BH,.
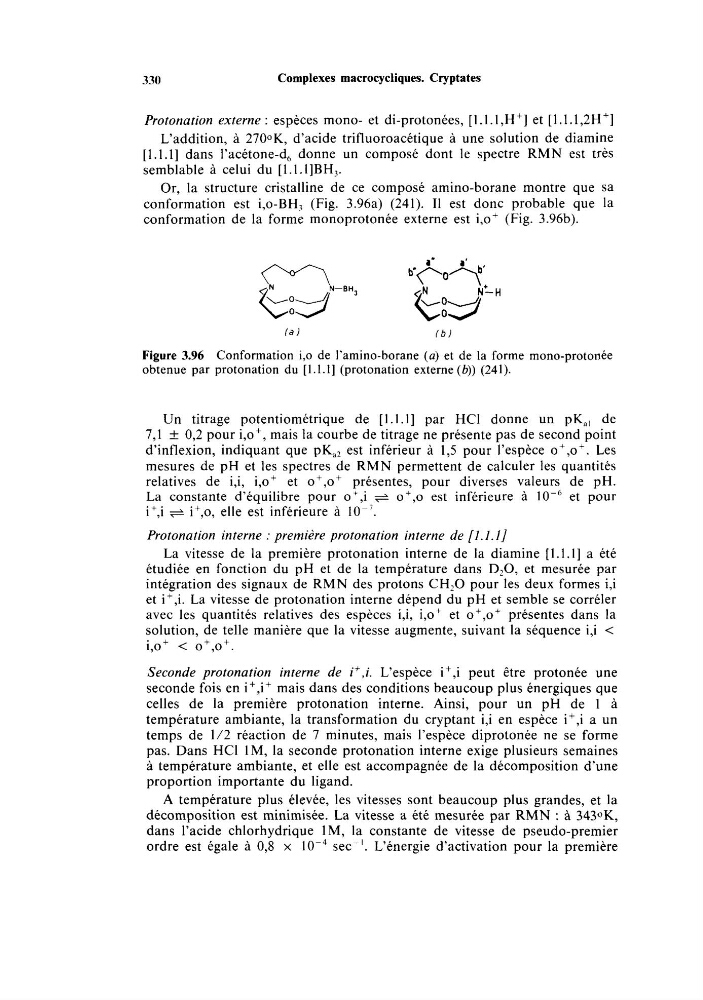
Or, la structure cristalline de ce composé amino-borane montre que sa
conformation est i,o-BH3 (Fig. 3.96a) (241). I1 est donc probable que la
conformation de la forme monoprotonée externe est i,o+ (Fig. 3.96b).
l a I
I b l
Figure 3.96
obtenue par protonation du [1.1.1] (protonation externe (b)) (241).
Conformation i,o de I'amino-borane ( a ) et de la forme mono-protonée
Un titrage potentiométrique de [l.i.i] par HCI donne un pK,, de
7,l f 0,2 pour i,o+, mais la courbe de titrage ne présente pas de second point
d'inflexion, indiquant que pK,, est inférieur à 1,5 pour l'espèce o+,o+. Les
mesures de pH et les spectres de RMN permettent de calculer les quantités
relatives de i,i, i,o+ et o+,o+ présentes, pour diverses valeurs de pH.
La constante d'équilibre pour o+,i + o+,o est inférieure à
et pour
i+,i + i+,o, elle est inférieure à io-'.
Protonation interne : première protonation interne de [I.I. 11
La vitesse de la première protonation interne de la diamine [l.l.i] a été
étudiée en fonction du pH et de la température dans D,O, et mesurée par
intégration des signaux de RMN des protons CH,O pour les deux formes i,i
et i+,i. La vitesse de protonation interne dépend du pH et semble se corréler
avec les quantités relatives des espèces i,i, i,o+ et o+,o+ présentes dans la
solution, de telle manière que la vitesse augmente, suivant la séquence i,i <
i,o+ < o+,o+.
Seconde protonation interne d e P , i . L'espèce i+,i peut être protonée une
seconde fois en if,i+ mais dans des conditions beaucoup plus énergiques que
celles de la première protonation interne. Ainsi, pour un pH de 1 à
température ambiante, la transformation du cryptant i,i en espèce i+,i a un
temps de 112 réaction de 7 minutes, mais l'espèce diprotonée ne se forme
pas. Dans HCI lM, la seconde protonation interne exige plusieurs semaines
à température ambiante, et elle est accompagnée de la décomposition d'une
proportion importante du ligand.
A température plus élevée, les vitesses sont beaucoup plus grandes, et la
décomposition est minimisée. La vitesse a été mesurée par RMN : à 3430K,
dans l'acide chlorhydrique 1 M, la constante de vitesse de pseudo-premier
ordre est égale à 0,s x
sec-'. L'énergie d'activation pour la première