

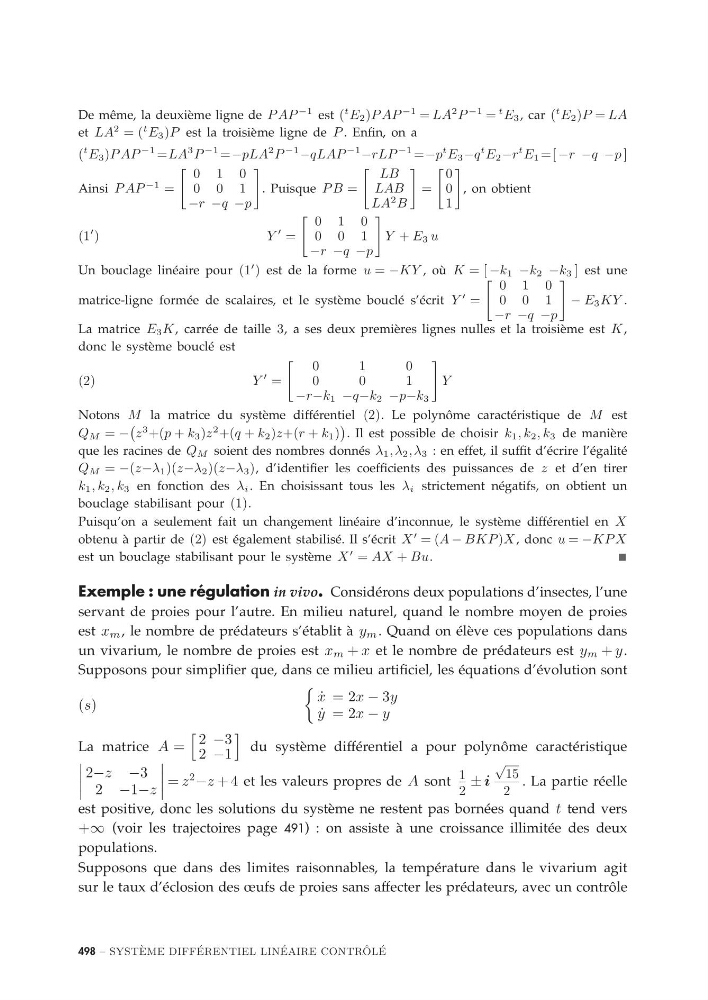
De même, la deuxième ligne de P AP
−1 est (
t E 2 )P AP
−1 = LA
2 P
−1 =
t E 3 , car (
t E 2 )P = LA
et LA
2 = (
t E 3 )P est la troisième ligne de P . Enfin, on a
(
t E 3 )P AP
−1 =LA
3 P
−1 =−pLA
2 P
−1 −qLAP
−1 −rLP
−1 =−p
t E 3 −q
t E 2 −r
t E 1 =[ −r −q −p ]
Ainsi P AP
−1 =
0 1 0
0 0 1
−r −q −p
. Puisque P B =
LB
LAB
LA
2 B
=
0
0
1
, on obtient
(1
)
Y
=
0 1 0
0 0 1
−r −q −p
Y + E 3 u
Un bouclage linéaire pour (1
) est de la forme u = −KY , où K = [ −k 1 −k 2 −k 3 ] est une
matrice-ligne formée de scalaires, et le système bouclé s’écrit Y
=
0 1 0
0 0 1
−r −q −p
− E 3 KY .
La matrice E 3 K , carrée de taille 3, a ses deux premières lignes nulles et la troisième est K ,
donc le système bouclé est
(2)
Y
=
0
1
0
0
0
1
−r−k 1 −q−k 2 −p−k 3
Y
Notons M la matrice du système différentiel (2). Le polynôme caractéristique de M est
Q M = −
z
3 +(p + k 3 )z
2 +(q + k 2 )z+(r + k 1 )
. Il est possible de choisir k 1 , k 2 , k 3 de manière
que les racines de Q M soient des nombres donnés λ 1 ,λ 2 ,λ 3 : en effet, il suffit d’écrire l’égalité
Q M = −(z−λ 1 )(z−λ 2 )(z−λ 3 ), d’identifier les coefficients des puissances de z et d’en tirer
k 1 , k 2 , k 3 en fonction des λ i . En choisissant tous les λ i strictement négatifs, on obtient un
bouclage stabilisant pour (1).
Puisqu’on a seulement fait un changement linéaire d’inconnue, le système différentiel en X
obtenu à partir de (2) est également stabilisé. Il s’écrit X
= (A − BKP )X , donc u = −KP X
est un bouclage stabilisant pour le système X
= AX + Bu.
Exemple : une régulation in vivo. Considérons deux populations d’insectes, l’une
servant de proies pour l’autre. En milieu naturel, quand le nombre moyen de proies
est x m , le nombre de prédateurs s’établit à y m . Quand on élève ces populations dans
un vivarium, le nombre de proies est x m + x et le nombre de prédateurs est y m + y.
Supposons pour simplifier que, dans ce milieu artificiel, les équations d’évolution sont
(s)
˙
x = 2x − 3y
˙
y = 2x − y
La matrice A =
2 −3
2 −1
du système différentiel a pour polynôme caractéristique
2−z −3
2 −1−z
= z
2
−z + 4 et les valeurs propres de A sont 1
2
± i
√
15
2
. La partie réelle
est positive, donc les solutions du système ne restent pas bornées quand t tend vers
+∞ (voir les trajectoires page 491) : on assiste à une croissance illimitée des deux
populations.
Supposons que dans des limites raisonnables, la température dans le vivarium agit
sur le taux d’éclosion des œufs de proies sans affecter les prédateurs, avec un contrôle
498 – SYST `
EME DIFF ´
ERENTIEL LIN ´
EAIRE CONTR ˆ
OL ´
E