

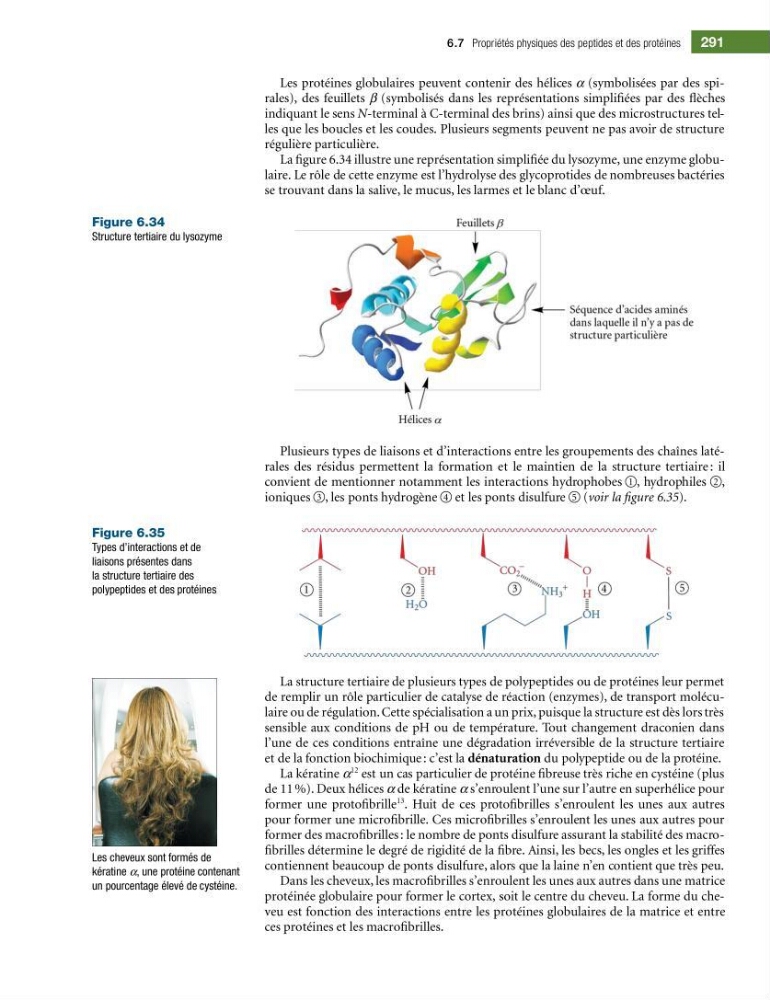
Les protéines globulaires peuvent contenir des hélices α (symbolisées par des spirales), des feuillets β (symbolisés dans les représentations simpli?ées par des èches
indiquant le sens N-terminal à C-terminal des brins) ainsi que des microstructures telles que les boucles et les coudes. Plusieurs segments peuvent ne pas avoir de structure
régulière particulière.
La ?gure 6.34 illustre une représentation simpli?ée du lysozyme, une enzyme globulaire. Le rôle de cette enzyme est l’hydrolyse des glycoprotides de nombreuses bactéries
se trouvant dans la salive, le mucus, les larmes et le blanc d’œuf.
Figure 6.34
Structure tertiaire du lysozyme
Plusieurs types de liaisons et d’interactions entre les groupements des chaînes latérales des résidus permettent la formation et le maintien de la structure tertiaire : il
convient de mentionner notamment les interactions hydrophobes 1 , hydrophiles 2 ,
ioniques 3 , les ponts hydrogène 4 et les ponts disulfure 5 (voir la ?gure 6.35).
Figure 6.35
Types d’interactions et de
liaisons présentes dans
la structure tertiaire des
polypeptides et des protéines
La structure tertiaire de plusieurs types de polypeptides ou de protéines leur permet
de remplir un rôle particulier de catalyse de réaction (enzymes), de transport moléculaire ou de régulation. Cette spécialisation a un prix, puisque la structure est dès lors très
sensible aux conditions de pH ou de température. Tout changement draconien dans
l’une de ces conditions entraîne une dégradation irréversible de la structure tertiaire
et de la fonction biochimique : c’est la dénaturation du polypeptide ou de la protéine.
La kératine α
12 est un cas particulier de protéine ?breuse très riche en cystéine (plus
de 11 %). Deux hélices α de kératine α s’enroulent l’une sur l’autre en superhélice pour
former une proto?brille
13 . Huit de ces proto?brilles s’enroulent les unes aux autres
pour former une micro?brille. Ces micro?brilles s’enroulent les unes aux autres pour
former des macro?brilles : le nombre de ponts disulfure assurant la stabilité des macro?brilles détermine le degré de rigidité de la ?bre. Ainsi, les becs, les ongles et les griffes
contiennent beaucoup de ponts disulfure, alors que la laine n’en contient que très peu.
Dans les cheveux, les macro?brilles s’enroulent les unes aux autres dans une matrice
protéinée globulaire pour former le cortex, soit le centre du cheveu. La forme du cheveu est fonction des interactions entre les protéines globulaires de la matrice et entre
ces protéines et les macro?brilles.
Les cheveux sont formés de
kératine α, une protéine contenant
un pourcentage élevé de cystéine.
6.7 Propriétés physiques des peptides et des protéines
291