

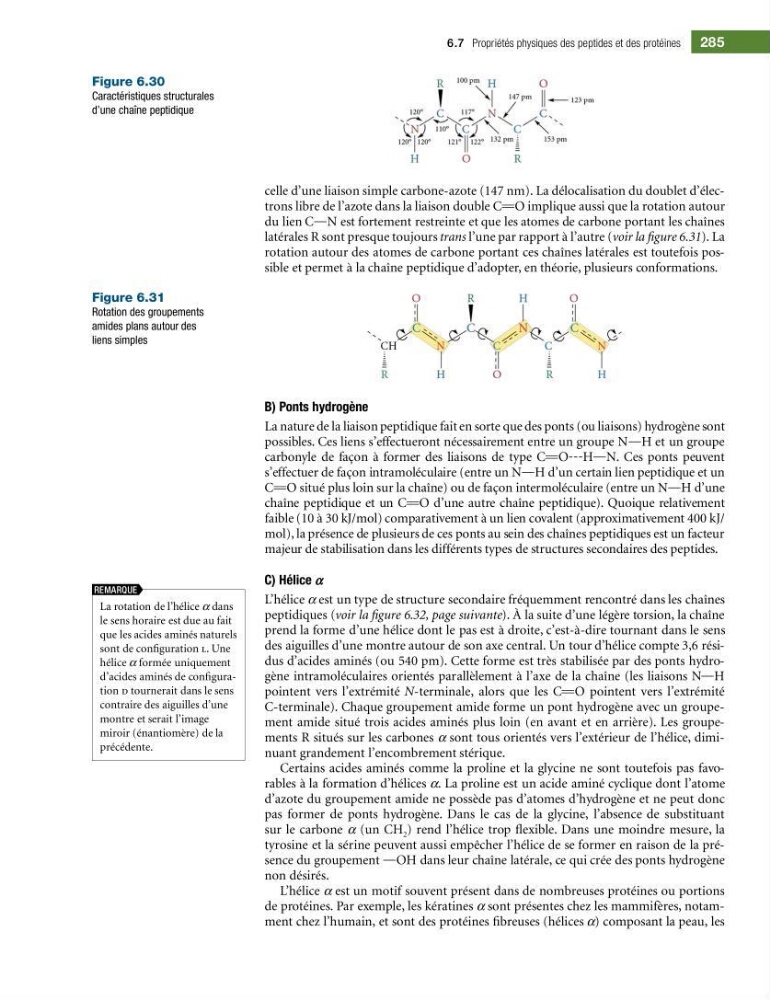
celle d’une liaison simple carbone-azote (147 nm). La délocalisation du doublet d’électrons libre de l’azote dans la liaison double CPO implique aussi que la rotation autour
du lien CON est fortement restreinte et que les atomes de carbone portant les chaînes
latérales R sont presque toujours trans l’une par rapport à l’autre (voir la ?gure 6.31). La
rotation autour des atomes de carbone portant ces chaînes latérales est toutefois possible et permet à la chaîne peptidique d’adopter, en théorie, plusieurs conformations.
Figure 6.31
Rotation des groupements
amides plans autour des
liens simples
B) Ponts hydrogène
La nature de la liaison peptidique fait en sorte que des ponts (ou liaisons) hydrogène sont
possibles. Ces liens s’effectueront nécessairement entre un groupe NOH et un groupe
carbonyle de façon à former des liaisons de type CPO---HON. Ces ponts peuvent
s’effectuer de façon intramoléculaire (entre un NOH d’un certain lien peptidique et un
CPO situé plus loin sur la chaîne) ou de façon intermoléculaire (entre un NOH d’une
chaîne peptidique et un CPO d’une autre chaîne peptidique). Quoique relativement
faible (10 à 30 kJ/mol) comparativement à un lien covalent (approximativement 400 kJ/
mol), la présence de plusieurs de ces ponts au sein des chaînes peptidiques est un facteur
majeur de stabilisation dans les différents types de structures secondaires des peptides.
C) Hélice α
L’hélice α est un type de structure secondaire fréquemment rencontré dans les chaînes
peptidiques (voir la ?gure 6.32, page suivante). À la suite d’une légère torsion, la chaîne
prend la forme d’une hélice dont le pas est à droite, c’est-à-dire tournant dans le sens
des aiguilles d’une montre autour de son axe central. Un tour d’hélice compte 3,6 résidus d’acides aminés (ou 540 pm). Cette forme est très stabilisée par des ponts hydrogène intramoléculaires orientés parallèlement à l’axe de la chaîne (les liaisons NOH
pointent vers l’extrémité N-terminale, alors que les CPO pointent vers l’extrémité
C-terminale). Chaque groupement amide forme un pont hydrogène avec un groupement amide situé trois acides aminés plus loin (en avant et en arrière). Les groupements R situés sur les carbones α sont tous orientés vers l’extérieur de l’hélice, diminuant grandement l’encombrement stérique.
Certains acides aminés comme la proline et la glycine ne sont toutefois pas favorables à la formation d’hélices α. La proline est un acide aminé cyclique dont l’atome
d’azote du groupement amide ne possède pas d’atomes d’hydrogène et ne peut donc
pas former de ponts hydrogène. Dans le cas de la glycine, l’absence de substituant
sur le carbone α (un CH 2 ) rend l’hélice trop exible. Dans une moindre mesure, la
tyrosine et la sérine peuvent aussi empêcher l’hélice de se former en raison de la présence du groupe ment OOH dans leur chaîne latérale, ce qui crée des ponts hydrogène
non désirés.
L’hélice α est un motif souvent présent dans de nombreuses protéines ou portions
de protéines. Par exemple, les kératines α sont présentes chez les mammifères, notamment chez l’humain, et sont des protéines ?breuses (hélices α) composant la peau, les
La rotation de l’hélice α dans
le sens horaire est due au fait
que les acides aminés naturels
sont de con?guration l. Une
hélice α formée uniquement
d’acides aminés de con?guration d tournerait dans le sens
contraire des aiguilles d’une
montre et serait l’image
miroir (énantiomère) de la
précédente.
REMARQUE
Figure 6.30
Caractéristiques structurales
d’une chaîne peptidique
6.7 Propriétés physiques des peptides et des protéines
285