

Appareil reproducteur
71
Dans 5 % des cas, les mécanismes d’auto-incompatibilité sont remplacés ou
se superposent à la séparation des sexes dans l’espace (espèces dioïques à
pieds mâle et femelle; espèces monoïques à fleurs unisexuées; dispositifs
mécaniques comme l’hétérostylie des Primevères, p. 208) ou dans le temps
(pollen et ovule ne sont pas mûrs au même moment; nous en verrons plusieurs
exemples chez les Malvacées, Apiacées. Astéracées…).
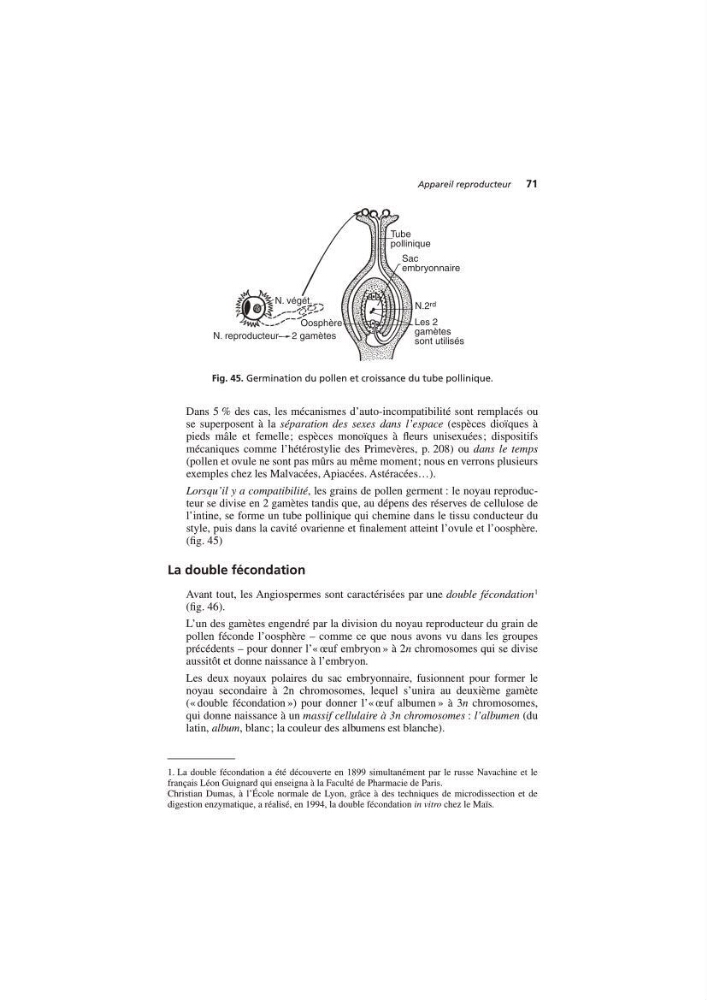
Lorsqu’il y a compatibilité, les grains de pollen germent : le noyau reproducteur se divise en 2 gamètes tandis que, au dépens des réserves de cellulose de
l’intine, se forme un tube pollinique qui chemine dans le tissu conducteur du
style, puis dans la cavité ovarienne et finalement atteint l’ovule et l’oosphère.
(fig. 45)
La double fécondation
Avant tout, les Angiospermes sont caractérisées par une double fécondation
1
(fig. 46).
L’un des gamètes engendré par la division du noyau reproducteur du grain de
pollen féconde l’oosphère – comme ce que nous avons vu dans les groupes
précédents – pour donner l’« œuf embryon » à 2n chromosomes qui se divise
aussitôt et donne naissance à l’embryon.
Les deux noyaux polaires du sac embryonnaire, fusionnent pour former le
noyau secondaire à 2n chromosomes, lequel s’unira au deuxième gamète
(« double fécondation ») pour donner l’« œuf albumen » à 3n chromosomes,
qui donne naissance à un massif cellulaire à 3n chromosomes : l’albumen (du
latin, album, blanc; la couleur des albumens est blanche).
1. La double fécondation a été découverte en 1899 simultanément par le russe Navachine et le
français Léon Guignard qui enseigna à la Faculté de Pharmacie de Paris.
Christian Dumas, à l’École normale de Lyon, grâce à des techniques de microdissection et de
digestion enzymatique, a réalisé, en 1994, la double fécondation in vitro chez le Maïs.
N. reproducteur 2 gamètes
N. végét.
Oosphère
Tube
pollinique
Sac
embryonnaire
N.2 rd
Les 2
gamètes
sont utilisés
Fig. 45. Germination du pollen et croissance du tube pollinique.