

CHAPITRE 3. DYNAMIQUE DE POPULATION EN TEMPS DISCRET
Dans le Chapitre 5, nous allons étudier la dynamique des population en temps continu
et dans le
6, nous allons chercher à comprendre la généalogie d’un échantillon
d’individus.
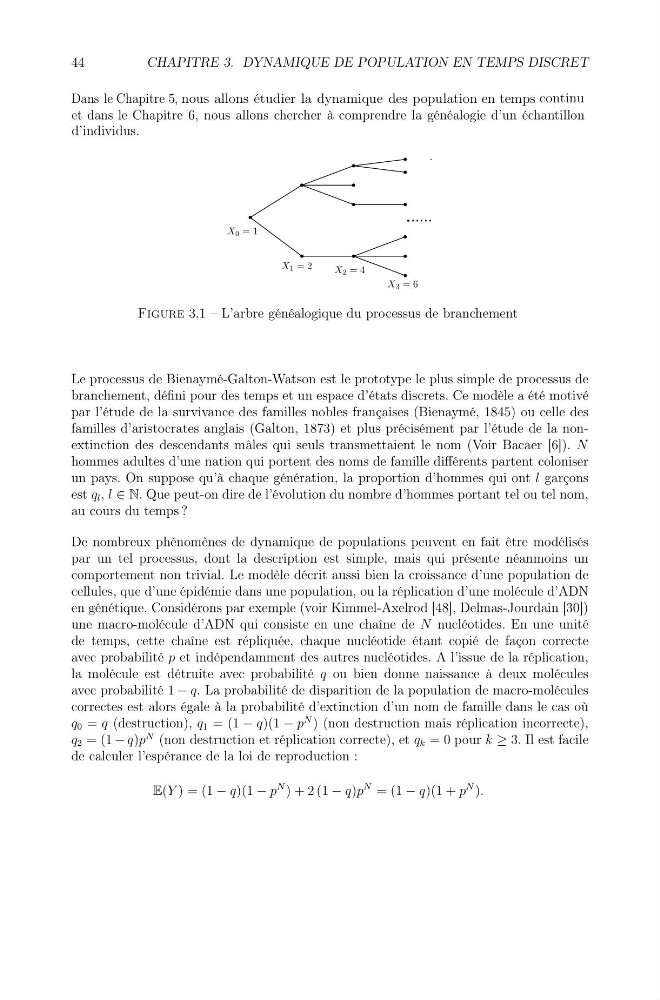
X 0 = 1
X 1 = 2
X 2 = 4
X 3 = 6
.
Figure 3.1 – L’arbre généalogique du processus de branchement
Le processus de Bienaymé-Galton-Watson est le prototype le plus simple de processus de
branchement, défini pour des temps et un espace d’états discrets. Ce modèle a été motivé
par l’étude de la survivance des familles nobles françaises (Bienaymé, 1845) ou celle des
familles d’aristocrates anglais (Galton, 1873) et plus précisément par l’étude de la nonextinction des descendants mâles qui seuls transmettaient le nom (Voir Bacaer [6]). N
hommes adultes d’une nation qui portent des noms de famille différents partent coloniser
un pays. On suppose qu’à chaque génération, la proportion d’hommes qui ont l garçons
est q l , l ∈ N. Que peut-on dire de l’évolution du nombre d’hommes portant tel ou tel nom,
au cours du temps ?
De nombreux phénomènes de dynamique de populations peuvent en fait être modélisés
par un tel processus, dont la description est simple, mais qui présente néanmoins un
comportement non trivial. Le modèle décrit aussi bien la croissance d’une population de
cellules, que d’une épidémie dans une population, ou la réplication d’une molécule d’ADN
en génétique. Considérons par exemple (voir Kimmel-Axelrod [48], Delmas-Jourdain [30])
une macro-molécule d’ADN qui consiste en une chaîne de N nucléotides. En une unité
de temps, cette chaîne est répliquée, chaque nucléotide étant copié de façon correcte
avec probabilité p et indépendamment des autres nucléotides. A l’issue de la réplication,
la molécule est détruite avec probabilité q ou bien donne naissance à deux molécules
avec probabilité 1 − q. La probabilité de disparition de la population de macro-molécules
correctes est alors égale à la probabilité d’extinction d’un nom de famille dans le cas où
q 0 = q (destruction), q 1 = (1 − q)(1 − p
N ) (non destruction mais réplication incorrecte),
q 2 = (1 − q)p
N (non destruction et réplication correcte), et q k = 0 pour k ≥ 3. Il est facile
de calculer l’espérance de la loi de reproduction :
E(Y ) = (1 − q)(1 − p
N ) + 2 (1 − q)p
N = (1 − q)(1 + p
N ).
44
Chapitre