

L
K ((z) = γK
2 y
f (z −
e 1
K
) − 2f (z −
e 2
K
) + f (z −
e 3
K
)
+γK
2 nx
2
f (z +
e 1
K
) + f (z −
e 1
K
) − 2f (z)
+γK
2 2nx(1 − x)
f (z +
e 2
K
) + f (z −
e 2
K
) − 2f (z)
+γK
2 n(1 − x)
2
f (z +
e 3
K
) + f (z −
e 3
K
) − 2f (z)
+βKnx
2
f (z +
e 1
K
) − f (z)
+βK2nx(1 − x)
f (z +
e 2
K
) − f (z)
+βKn(1 − x)
2
f (z +
e 3
K
) − f (z)
+K
i∈{1,2,3}
z i (δ + cn)
f (z −
e i
K
) − f (z)
.
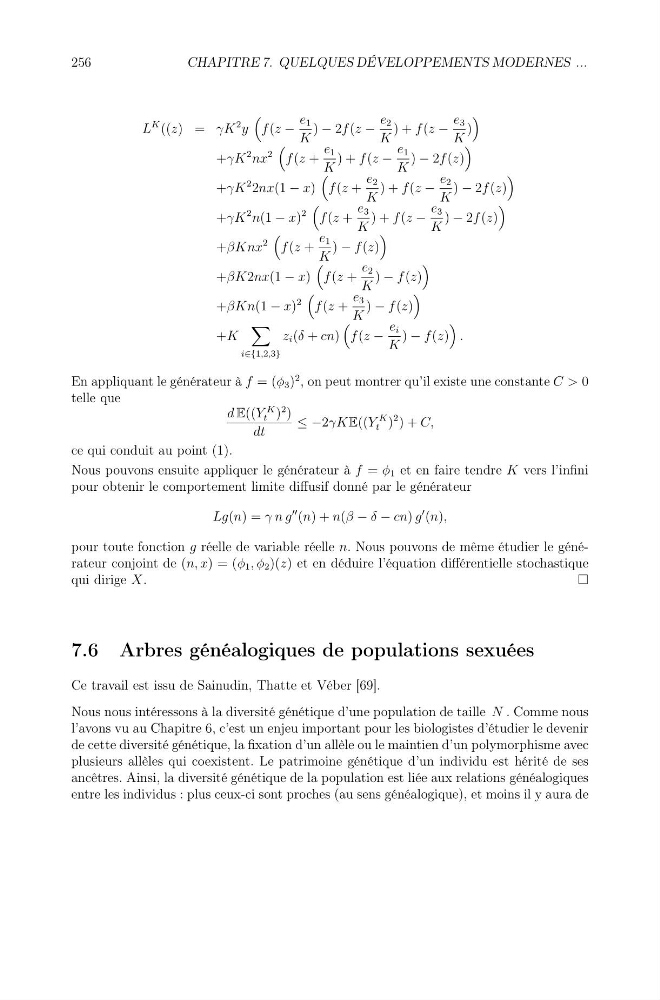
En appliquant le générateur à f = (φ 3 )
2 , on peut montrer qu’il existe une constante C > 0
telle que
d E((Y
K
t )
2 )
dt
≤ −2γKE((Y
K
t )
2 ) + C,
ce qui conduit au point (1).
Nous pouvons ensuite appliquer le générateur à f = φ 1 et en faire tendre K vers l’infini
pour obtenir le comportement limite diffusif donné par le générateur
Lg(n) = γ n g
(n) + n(β − δ − cn) g
(n),
pour toute fonction g réelle de variable réelle n. Nous pouvons de même étudier le générateur conjoint de (n, x) = (φ 1 , φ 2 )(z) et en déduire l’équation différentielle stochastique
qui dirige X.
7.6 Arbres généalogiques de populations sexuées
Ce travail est issu de Sainudin, Thatte et Véber [69].
Nous nous intéressons à la diversité génétique d’une population de taille N . Comme nous
l’avons vu au Chapitre 6, c’est un enjeu important pour les biologistes d’étudier le devenir
de cette diversité génétique, la fixation d’un allèle ou le maintien d’un polymorphisme avec
plusieurs allèles qui coexistent. Le patrimoine génétique d’un individu est hérité de ses
ancêtres. Ainsi, la diversité génétique de la population est liée aux relations généalogiques
entre les individus : plus ceux-ci sont proches (au sens généalogique), et moins il y aura de
256
CHAPITRE 7. QUELQUES DÉVELOPPEMENTS MODERNES ...