

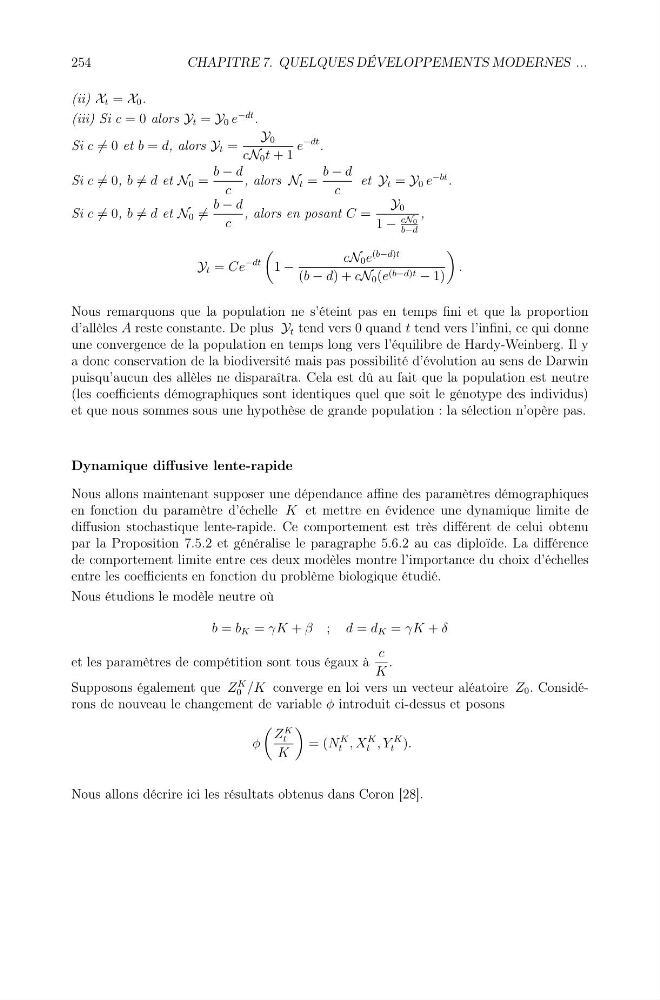
(ii) X t = X 0 .
(iii) Si c = 0 alors Y t = Y 0 e
−dt .
Si c = 0 et b = d, alors Y t =
Y 0
cN 0 t + 1
e
−dt .
Si c = 0, b = d et N 0 =
b − d
c
, alors N t =
b − d
c
et Y t = Y 0 e
−bt .
Si c = 0, b = d et N 0 =
b − d
c
, alors en posant C =
Y 0
1 −
cN0
b−d
,
Y t = Ce
−dt
1 −
cN 0 e
(b−d)t
(b − d) + cN 0 (e (b−d)t − 1)
.
Nous remarquons que la population ne s’éteint pas en temps fini et que la proportion
d’allèles A reste constante. De plus Y t tend vers 0 quand t tend vers l’infini, ce qui donne
une convergence de la population en temps long vers l’équilibre de Hardy-Weinberg. Il y
a donc conservation de la biodiversité mais pas possibilité d’évolution au sens de Darwin
puisqu’aucun des allèles ne disparaîtra. Cela est dû au fait que la population est neutre
(les coefficients démographiques sont identiques quel que soit le génotype des individus)
et que nous sommes sous une hypothèse de grande population : la sélection n’opère pas.
Dynamique diffusive lente-rapide
Nous allons maintenant supposer une dépendance affine des paramètres démographiques
en fonction du paramètre d’échelle K et mettre en évidence une dynamique limite de
diffusion stochastique lente-rapide. Ce comportement est très différent de celui obtenu
par la Proposition 7.5.2 et généralise le paragraphe 5.6.2 au cas diploïde. La différence
de comportement limite entre ces deux modèles montre l’importance du choix d’échelles
entre les coefficients en fonction du problème biologique étudié.
Nous étudions le modèle neutre où
b = b K = γK + β ; d = d K = γK + δ
et les paramètres de compétition sont tous égaux à
c
K
.
Supposons également que Z
K
0 /K converge en loi vers un vecteur aléatoire Z 0 . Considérons de nouveau le changement de variable φ introduit ci-dessus et posons
φ
Z
K
t
K
= (N
K
t , X
K
t , Y
K
t ).
Nous allons décrire ici les résultats obtenus dans Coron [28].
254
CHAPITRE 7. QUELQUES DÉVELOPPEMENTS MODERNES ...