

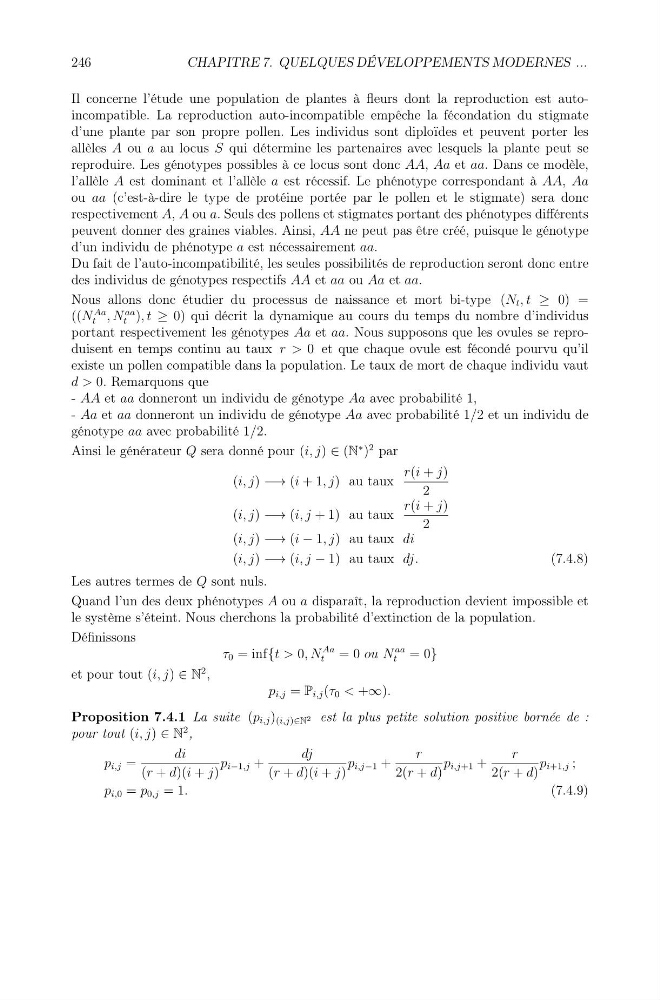
Il concerne l’étude une population de plantes à fleurs dont la reproduction est autoincompatible. La reproduction auto-incompatible empêche la fécondation du stigmate
d’une plante par son propre pollen. Les individus sont diploïdes et peuvent porter les
allèles A ou a au locus S qui détermine les partenaires avec lesquels la plante peut se
reproduire. Les génotypes possibles à ce locus sont donc AA, Aa et aa. Dans ce modèle,
l’allèle A est dominant et l’allèle a est récessif. Le phénotype correspondant à AA, Aa
ou aa (c’est-à-dire le type de protéine portée par le pollen et le stigmate) sera donc
respectivement A, A ou a. Seuls des pollens et stigmates portant des phénotypes différents
peuvent donner des graines viables. Ainsi, AA ne peut pas être créé, puisque le génotype
d’un individu de phénotype a est nécessairement aa.
Du fait de l’auto-incompatibilité, les seules possibilités de reproduction seront donc entre
des individus de génotypes respectifs AA et aa ou Aa et aa.
Nous allons donc étudier du processus de naissance et mort bi-type (N t , t ≥ 0) =
((N
Aa
t , N
aa
t ), t ≥ 0) qui décrit la dynamique au cours du temps du nombre d’individus
portant respectivement les génotypes Aa et aa. Nous supposons que les ovules se reproduisent en temps continu au taux r > 0 et que chaque ovule est fécondé pourvu qu’il
existe un pollen compatible dans la population. Le taux de mort de chaque individu vaut
d > 0. Remarquons que
- AA et aa donneront un individu de génotype Aa avec probabilité 1,
- Aa et aa donneront un individu de génotype Aa avec probabilité 1/2 et un individu de
génotype aa avec probabilité 1/2.
Ainsi le générateur Q sera donné pour (i, j) ∈ (N
∗ )
2 par
(i, j) −→ (i + 1, j) au taux
r(i + j)
2
(i, j) −→ (i, j + 1) au taux
r(i + j)
2
(i, j) −→ (i − 1, j) au taux di
(i, j) −→ (i, j − 1) au taux dj.
(7.4.8)
Les autres termes de Q sont nuls.
Quand l’un des deux phénotypes A ou a disparaît, la reproduction devient impossible et
le système s’éteint. Nous cherchons la probabilité d’extinction de la population.
Définissons
τ 0 = inf{t > 0, N
Aa
t
= 0 ou N
aa
t = 0}
et pour tout (i, j) ∈ N
2 ,
p i,j = P i,j (τ 0 < +∞).
Proposition 7.4.1 La suite (p i,j ) (i,j)∈N 2 est la plus petite solution positive bornée de :
pour tout (i, j) ∈ N
2 ,
p i,j =
di
(r + d)(i + j)
p i−1,j +
dj
(r + d)(i + j)
p i,j−1 +
r
2(r + d)
p i,j+1 +
r
2(r + d)
p i+1,j ;
p i,0 = p 0,j = 1.
(7.4.9)
246
CHAPITRE 7. QUELQUES DÉVELOPPEMENTS MODERNES ...