

2 6
CHAPITRE 6. PROCESSUS D’ÉVOLUTION GÉNÉTIQUE
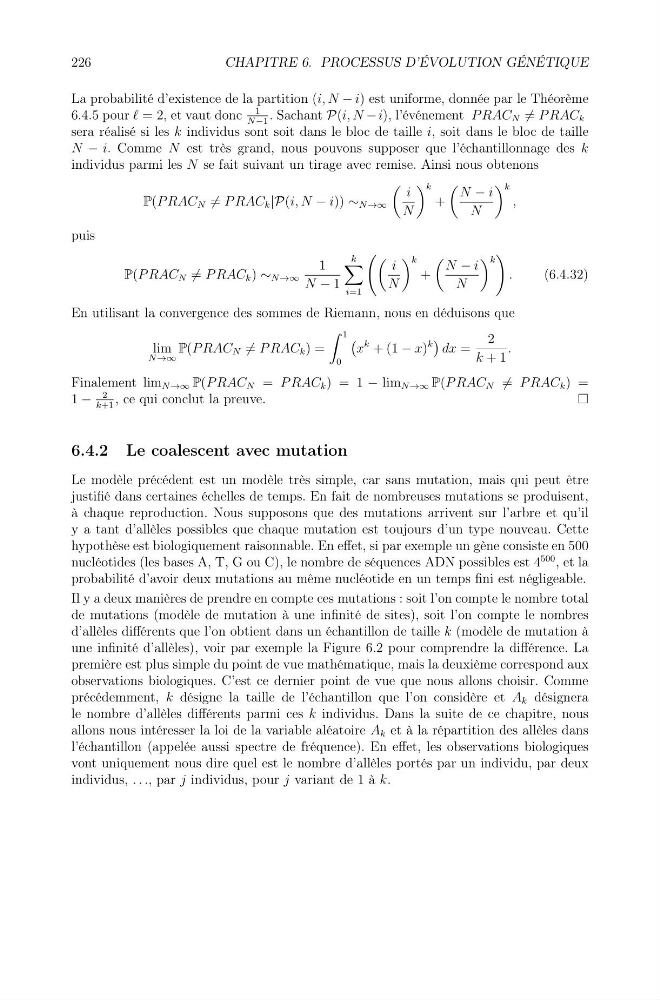
La probabilité d’existence de la partition (i, N − i) est uniforme, donnée par le Théorème
6.4.5 pour = 2, et vaut donc
1
N −1
. Sachant P(i, N − i), l’événement P RAC N = P RAC k
sera réalisé si les k individus sont soit dans le bloc de taille i, soit dans le bloc de taille
N − i. Comme N est très grand, nous pouvons supposer que l’échantillonnage des k
individus parmi les N se fait suivant un tirage avec remise. Ainsi nous obtenons
P(P RAC N = P RAC k |P(i, N − i)) ∼ N →∞
i
N
k
+
N − i
N
k
,
puis
P(P RAC N = P RAC k ) ∼ N →∞
1
N − 1
k
i=1
i
N
k
+
N − i
N
k
.
(6.4.32)
En utilisant la convergence des sommes de Riemann, nous en déduisons que
lim
N →∞
P(P RAC N = P RAC k ) =
1
0
x
k + (1 − x)
k
dx =
2
k + 1
.
Finalement lim N →∞ P(P RAC N = P RAC k ) = 1 − lim N →∞ P(P RAC N = P RAC k ) =
1 −
2
k+1
, ce qui conclut la preuve.
6.4.2 Le coalescent avec mutation
Le modèle précédent est un modèle très simple, car sans mutation, mais qui peut être
justifié dans certaines échelles de temps. En fait de nombreuses mutations se produisent,
à chaque reproduction. Nous supposons que des mutations arrivent sur l’arbre et qu’il
y a tant d’allèles possibles que chaque mutation est toujours d’un type nouveau. Cette
hypothèse est biologiquement raisonnable. En effet, si par exemple un gène consiste en 500
nucléotides (les bases A, T, G ou C), le nombre de séquences ADN possibles est 4
500 , et la
probabilité d’avoir deux mutations au même nucléotide en un temps fini est négligeable.
Il y a deux manières de prendre en compte ces mutations : soit l’on compte le nombre total
de mutations (modèle de mutation à une infinité de sites), soit l’on compte le nombres
d’allèles différents que l’on obtient dans un échantillon de taille k (modèle de mutation à
une infinité d’allèles), voir par exemple la Figure 6.2 pour comprendre la différence. La
première est plus simple du point de vue mathématique, mais la deuxième correspond aux
observations biologiques. C’est ce dernier point de vue que nous allons choisir. Comme
précédemment, k désigne la taille de l’échantillon que l’on considère et A k désignera
le nombre d’allèles différents parmi ces k individus. Dans la suite de ce chapitre, nous
allons nous intéresser la loi de la variable aléatoire A k et à la répartition des allèles dans
l’échantillon (appelée aussi spectre de fréquence). En effet, les observations biologiques
vont uniquement nous dire quel est le nombre d’allèles portés par un individu, par deux
individus, . . ., par j individus, pour j variant de 1 à k.
2