

6.2. POPULATION FINIE : LE MODÈLE DE WRIGHT-FISHER
2 9
Remarque 6.2.9 Comme nous venons de le voir, la preuve de la Proposition 6.2.7 découle d’un calcul très simple. Néanmoins nous proposons maintenant une autre preuve,
associant à cette étude de la population dans le sens direct du temps une approche duale,
liée à la généalogie des individus. Cette approche a été développée par Durrett [31] et sa
compréhension nous sera utile dans le Paragraphe 6.5. Nous appelons individus les N copies du locus considéré et nous allons étudier leur généalogie en remontant le temps. En
effet, deux individus au temps n seront hétérozygotes s’ils n’ont pas eu d’ancêtre commun
et si au temps 0, leurs parents étaient également hétérozygotes.
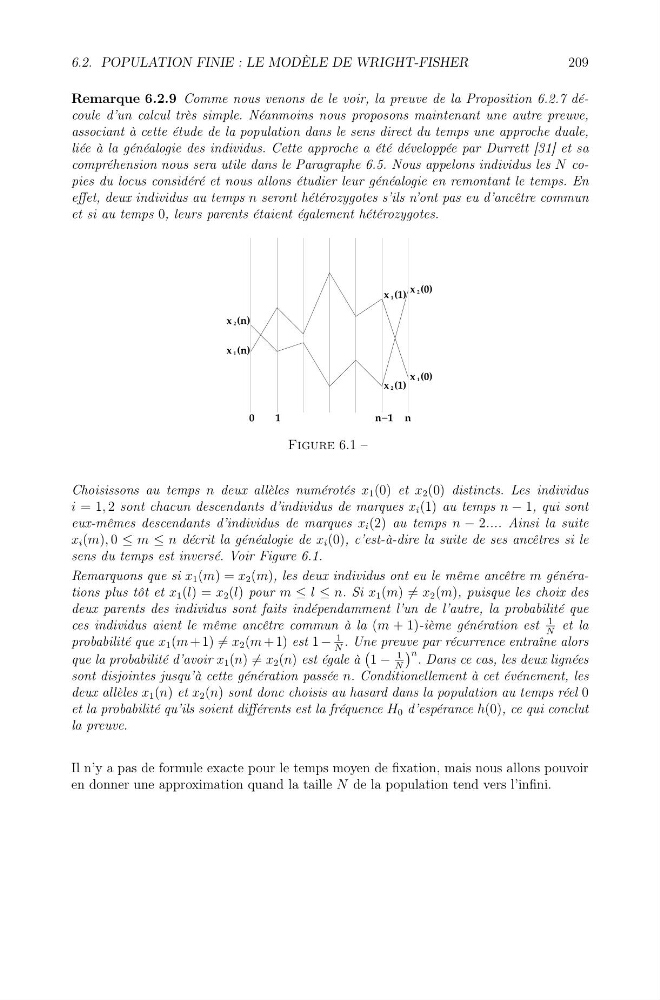
Figure 6.1 –
Choisissons au temps n deux allèles numérotés x 1 (0) et x 2 (0) distincts. Les individus
i = 1, 2 sont chacun descendants d’individus de marques x i (1) au temps n − 1, qui sont
eux-mêmes descendants d’individus de marques x i (2) au temps n − 2.... Ainsi la suite
x i (m), 0 ≤ m ≤ n décrit la généalogie de x i (0), c’est-à-dire la suite de ses ancêtres si le
sens du temps est inversé. Voir Figure 6.1.
Remarquons que si x 1 (m) = x 2 (m), les deux individus ont eu le même ancêtre m générations plus tôt et x 1 (l) = x 2 (l) pour m ≤ l ≤ n. Si x 1 (m) = x 2 (m), puisque les choix des
deux parents des individus sont faits indépendamment l’un de l’autre, la probabilité que
ces individus aient le même ancêtre commun à la (m + 1)-ième génération est
1
N
et la
probabilité que x 1 (m + 1) = x 2 (m + 1) est 1 −
1
N
. Une preuve par récurrence entraîne alors
que la probabilité d’avoir x 1 (n) = x 2 (n) est égale à
1 −
1
N
n . Dans ce cas, les deux lignées
sont disjointes jusqu’à cette génération passée n. Conditionellement à cet événement, les
deux allèles x 1 (n) et x 2 (n) sont donc choisis au hasard dans la population au temps réel 0
et la probabilité qu’ils soient différents est la fréquence H 0 d’espérance h(0), ce qui conclut
la preuve.
Il n’y a pas de formule exacte pour le temps moyen de fixation, mais nous allons pouvoir
en donner une approximation quand la taille N de la population tend vers l’infini.
0