

178
13 Généalogies et coalescence
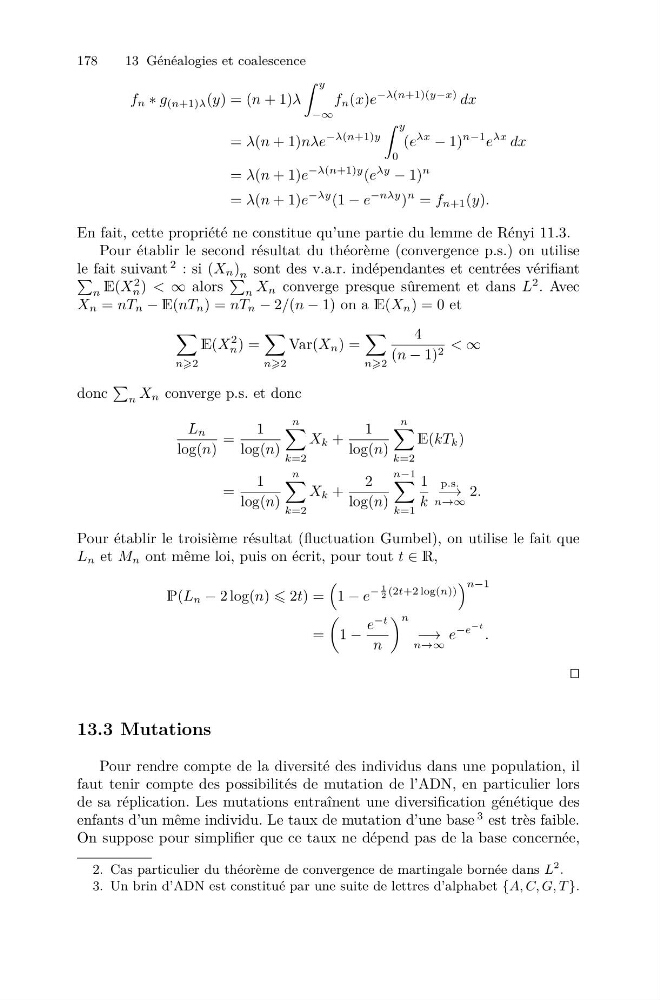
f n ∗ g (n+1)λ (y) = (n + 1)λ
y
−∞
f n (x)e
−λ(n+1)(y−x) dx
= λ(n + 1)nλe
−λ(n+1)y
y
0
(e
λx
− 1)
n−1 e
λx dx
= λ(n + 1)e
−λ(n+1)y (e
λy
− 1)
n
= λ(n + 1)e
−λy (1 − e
−nλy )
n = f n+1 (y).
En fait, cette propriété ne constitue qu’une partie du lemme de Rényi 11.3.
Pour établir le second résultat du théorème (convergence p.s.) on utilise
le fait suivant
2 : si (X n ) n sont des v.a.r. indépendantes et centrées vérifiant
n E(X
2
n ) < ∞ alors
n X n converge presque sûrement et dans L
2 . Avec
X n = nT n − E(nT n ) = nT n − 2/(n − 1) on a E(X n ) = 0 et
n2
E(X
2
n ) =
n2
Var(X n ) =
n2
4
(n − 1) 2 < ∞
donc
n X n converge p.s. et donc
L n
log(n)
=
1
log(n)
n
k=2
X k +
1
log(n)
n
k=2
E(kT k )
=
1
log(n)
n
k=2
X k +
2
log(n)
n−1
k=1
1
k
p.s.
−→
n→∞
2.
Pour établir le troisième résultat (fluctuation Gumbel), on utilise le fait que
L n et M n ont même loi, puis on écrit, pour tout t ∈ R,
P(L n − 2 log(n) 2t) =
1 − e
−
1
2 (2t+2 log(n))
n−1
=
1 −
e
−t
n
n
−→
n→∞
e
−e
−t .
13.3 Mutations
Pour rendre compte de la diversité des individus dans une population, il
faut tenir compte des possibilités de mutation de l’ADN, en particulier lors
de sa réplication. Les mutations entraînent une diversification génétique des
enfants d’un même individu. Le taux de mutation d’une base
3 est très faible.
On suppose pour simplifier que ce taux ne dépend pas de la base concernée,
2. Cas particulier du théorème de convergence de martingale bornée dans L
2 .
3. Un brin d’ADN est constitué par une suite de lettres d’alphabet {A, C, G, T }.