

124
5 Du temps discret au temps continu
V (x) =
d
i=1
V
+
i (x) + V
−
i (x)
M (x, dy) =
d
i=1
p
+
i (x)δ x+s
+
i
+ p
−
i (x)δ x+s
−
i
(dy)
avec des taux de r´ eactions directes et inverses (V
+
i , V
−
i ) li´ es aux d r´ eactions
chimiques et les probabilit´ es de sauts (p
+
i , p
−
i ) = (V
+
i /V, V
−
i /V ). Pour chaque
configuration X t = ([A j ] (t)) 1≤j≤d = x = (x j ) 1≤j≤d ∈ Z
d
li´ ee au nombre
[A j ] (t) = x j de mol´ ecules A j au temps t, les taux des r´ eactions sont de la
forme
V
+
i (x) = λ
+
i
d
j=1
x
ai,j
j
et V
−
i (x) = λ
−
i
d
j=1
x
bi,j
j
pour des constantes positives λ
+
i et λ
+
i donn´ ees ou ` a estimer.
On remarquera que ce mod` ele poss` ede une unique horloge exponentielle
de sauts d´ etermin´ ee par le taux V (x). A chaque instant de saut, le noyau de
Markov M (x, dy) caract´ erise le choix al´ eatoire de la r´ eaction chimique qui se
produit. Ce mod` ele est parfois appel´ e algorithme de Gillespie.
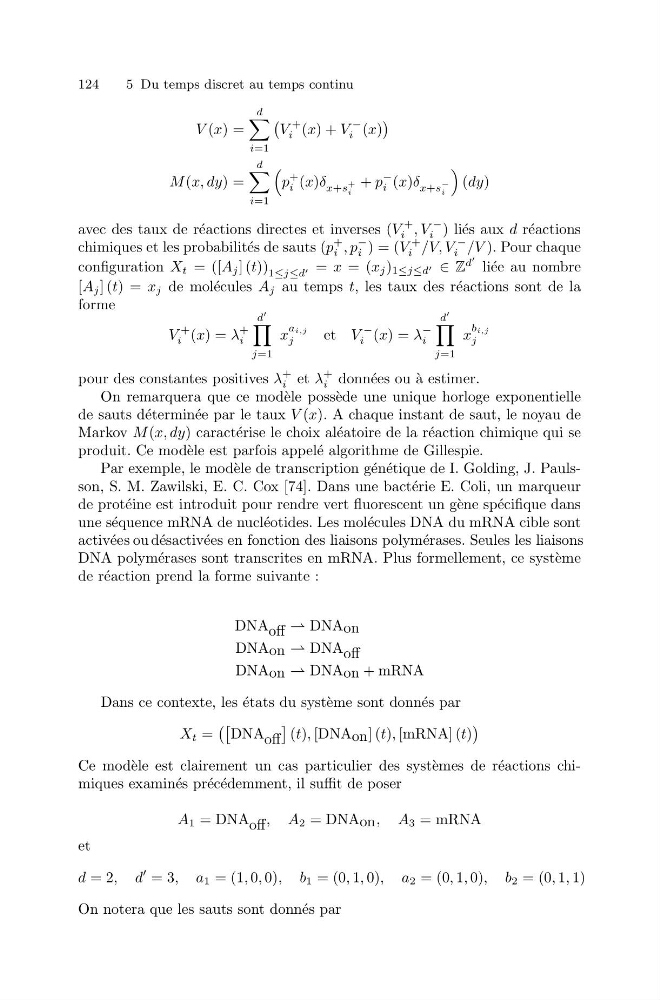
Par exemple, le mod` ele de transcription g´ en´ etique de I. Golding, J. Paulsson, S. M. Zawilski, E. C. Cox [74]. Dans une bact´ erie E. Coli, un marqueur
de prot´ eine est introduit pour rendre vert fluorescent un g` ene sp´ ecifique dans
une s´ equence mRNA de nucl´ eotides. Les mol´ ecules DNA du mRNA cible sont
activ´ ees ou d´ esactiv´ ees en fonction des liaisons polym´ erases. Seules les liaisons
DNA polym´ erases sont transcrites en mRNA. Plus formellement, ce syst` eme
de r´ eaction prend la forme suivante :
DNA off DNA on
DNA on DNA off
DNA on DNA on + mRNA
Dans ce contexte, les ´ etats du syst` eme sont donn´ es par
X t =
DNA off
(t), [DNA on ] (t), [mRNA] (t)
Ce mod` ele est clairement un cas particulier des syst` emes de r´ eactions chimiques examin´ es pr´ ec´ edemment, il suffit de poser
A 1 = DNA off , A 2 = DNA on , A 3 = mRNA
et
d = 2, d
= 3, a 1 = (1, 0, 0), b 1 = (0, 1, 0), a 2 = (0, 1, 0), b 2 = (0, 1, 1)
On notera que les sauts sont donn´ es par