

CHAPITRE I
16
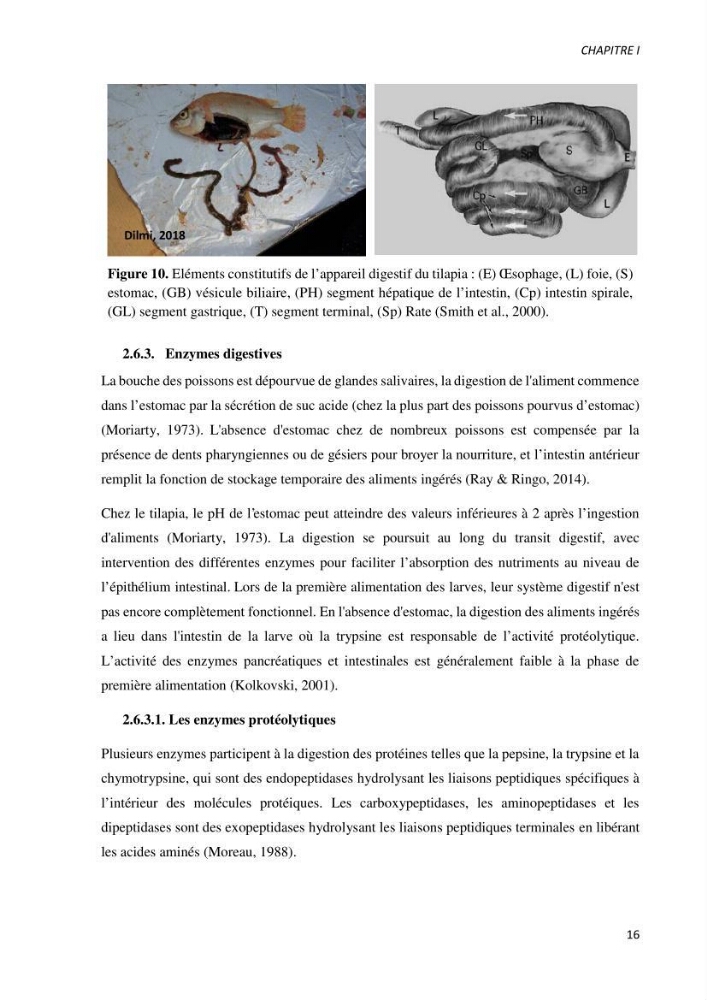
Figure 10. Eléments constitutifs de l’appareil digestif du tilapia : (E) Œsophage, (L) foie, (S)
estomac, (GB) vésicule biliaire, (PH) segment hépatique de l’intestin, (Cp) intestin spirale,
(GL) segment gastrique, (T) segment terminal, (Sp) Rate (Smith et al., 2000).
2.6.3. Enzymes digestives
La bouche des poissons est dépourvue de glandes salivaires, la digestion de l'aliment commence
dans l’estomac par la sécrétion de suc acide (chez la plus part des poissons pourvus d’estomac)
(Moriarty, 1973). L'absence d'estomac chez de nombreux poissons est compensée par la
présence de dents pharyngiennes ou de gésiers pour broyer la nourriture, et l’intestin antérieur
remplit la fonction de stockage temporaire des aliments ingérés (Ray & Ringo, 2014).
Chez le tilapia, le pH de l'estomac peut atteindre des valeurs inférieures à 2 après l’ingestion
d'aliments (Moriarty, 1973). La digestion se poursuit au long du transit digestif, avec
intervention des différentes enzymes pour faciliter l’absorption des nutriments au niveau de
l’épithélium intestinal. Lors de la première alimentation des larves, leur système digestif n'est
pas encore complètement fonctionnel. En l'absence d'estomac, la digestion des aliments ingérés
a lieu dans l'intestin de la larve où la trypsine est responsable de l’activité protéolytique.
L’activité des enzymes pancréatiques et intestinales est généralement faible à la phase de
première alimentation (Kolkovski, 2001).
2.6.3.1. Les enzymes protéolytiques
Plusieurs enzymes participent à la digestion des protéines telles que la pepsine, la trypsine et la
chymotrypsine, qui sont des endopeptidases hydrolysant les liaisons peptidiques spécifiques à
l’intérieur des molécules protéiques. Les carboxypeptidases, les aminopeptidases et les
dipeptidases sont des exopeptidases hydrolysant les liaisons peptidiques terminales en libérant
les acides aminés (Moreau, 1988).
Dilmi, 2018