

282
Y a-t-il une interaction de reconnaissance entre les oligosaccharides et l’ADN ?
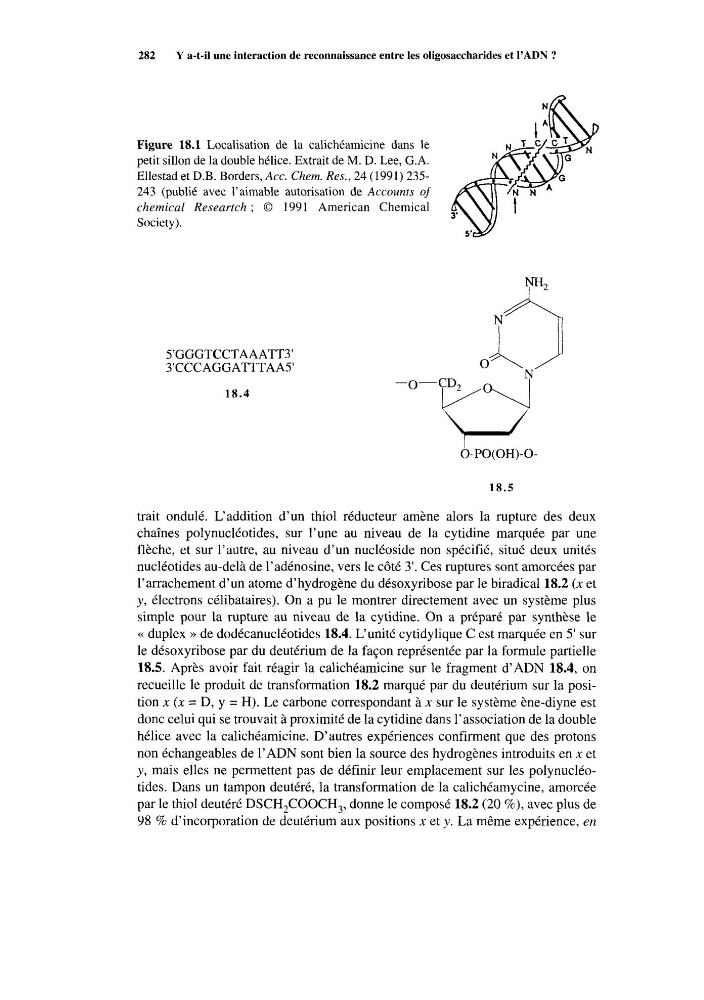
Figure 18.1 Localisation de la calichéamicine dans le
petit sillon de la double hélice. Extrait de M. D. Lee, G.A.
Ellestad et D.B. Borders,Acc. Chem. Res., 24 (1991) 235243 (publié avec l’aimable autorisation de Accounrs of
chemical Researtch ; O 1991 American Chemical
Society).
SGGGTCCTAAATT3’
3’CCCAGGATTTAAS
18.4
O-PO(0H)-O18.5
trait ondulé. L‘addition d’un thiol réducteur amène alors la rupture des deux
chaînes polynucléotides, sur l’une au niveau de la cytidine marquée par une
flèche, et sur l’autre, au niveau d’un nucléoside non spécifié, situé deux unités
nucléotides au-delà de l’adénosine, vers le côté 3’. Ces ruptures sont amorcées par
l’arrachement d’un atome d’hydrogène du désoxyribose par le biradical 18.2 (x et
y , électrons célibataires). On a pu le montrer directement avec un système plus
simple pour la rupture au niveau de la cytidine. On a préparé par synthèse le
<< duplex >> de dodécanucléotides 18.4. L‘unité cytidylique C est marquée en 5‘ sur
le désoxyribose par du deutérium de la façon représentée par la formule partielle
18.5. Après avoir fait réagir la calichéamicine sur le fragment d’ADN 18.4, on
recueille le produit de transformation 18.2 marqué par du deutérium sur la position x (x = D, y = H). Le carbone correspondant à x sur le système ène-diyne est
donc celui qui se trouvait à proximité de la cytidine dans l’association de la double
hélice avec la calichéamicine. D’autres expériences confirment que des protons
non échangeables de l’ADN sont bien la source des hydrogènes introduits en x et
y , mais elles ne permettent pas de définir leur emplacement sur les polynucléotides. Dans un tampon deutéré, la transformation de la calichéamycine, amorcée
par le thiol deutéré DSCH,COOCH, donne le composé 18.2 (20 %), avec plus de
98 % d’incorporation de deutérium aux positions x et y . La même expérience, en